
Dietary RNAi mediated silencing of HvPP2A affects the survival and reproduction of the 28-spotted ladybeetle, Henosepilachna vigintioctopunctata
-
摘要:目的
本研究通过饲喂法RNAi技术沉默了丝氨酸蛋白磷酸酶2A(PP2A)基因,探究其对茄二十八星瓢虫Henosepilachna vigintioctopunctata存活和生殖的影响。
方法使用RT-qPCR方法检测HvPP2A基因在茄二十八星瓢虫不同发育阶段(卵、1~4龄幼虫、蛹和成虫)和4龄幼虫不同组织(表皮、脂肪体、中肠和马氏管)中的表达模式。饲喂1龄幼虫不同浓度的dsHvPP2A溶液,研究HvPP2A基因沉默对茄二十八星瓢虫幼虫存活、发育及基因表达的影响。此外,通过饲喂处理3龄幼虫和雌成虫,探究HvPP2A在茄二十八星瓢虫发育、表型特征以及生理机能中的作用。
结果HvPP2A在茄二十八星瓢虫各发育阶段均有表达,但表达量有差异,其中雌虫期表达量最高;在不同组织中,HvPP2A在中肠的表达最高。dsHvPP2A对1龄幼虫的致死率存在明显的剂量效应。使用50 ng/µL的dsHvPP2A处理时,致死率达到82.5%,而使用100 ng/µL、200 ng/µL和500 ng/µL的dsHvPP2A时,致死率均达到100%。使用100 ng/µL的dsHvPP2A饲喂3龄幼虫可导致其蜕皮失败和死亡。当使用1 000 ng/µL的dsHvPP2A饲喂雌成虫后,与对照组相比,试验组卵巢发育和卵子形成受阻,无法正常产卵。
结论HvPP2A在茄二十八星瓢虫的生长发育和生殖中具有重要作用,有望成为茄二十八星瓢虫RNAi防治的潜在靶标基因。
Abstract:AimThis study investigated the impacts of silencing the serine protein phosphatase 2A (PP2A) gene on the survival and reproductive capabilities of the 28-spotted ladybeetle, Henosepilachna vigintioctopunctata, through a dietary RNA interference (RNAi) method.
MethodsThe expression patterns of HvPP2A were analyzed during different developmental stages (egg, 1st~4th instar larvae, and adult) and in various tissues (cuticle, fat body, midgut, and Malpighian tubules) of the 4th instar larvae using RT-qPCR. The impact of the HvPP2A gene on larval survival, development, and gene expression was evaluated by feeding the 1st instar larvae with different concentrations of dsHvPP2A. Moreover, the effects of HvPP2A on the developmental and phenotypic characteristics, as well as the physiological functions of both the 3rd instar larvae and female adults, were evaluated following treatment with dsHvPP2A.
ResultsThe study highlighted varying expression levels of HvPP2A across various developmental stages of H. vigintioctopunctata, with the highest expression detected in females. Notably, HvPP2A was predominantly expressed in the midgut among the analyzed tissues. The findings revealed a significant dose-dependent effect of dsHvPP2A on the mortality of the 1st instar larvae. Specifically, at a concentration of 50 ng/µL dsHvPP2A, the mortality rate of the 1st instar larvae reached 82.5%, escalating to 100% at higher concentrations of 100 ng/µL, 200 ng/µL, and 500 ng/µL. Furthermore, administering 100 ng/µL dsHvPP2A to the 3rd instar larvae resulted in failure to molt and subsequent death. Additionally, feeding female adults with 1 000 ng/µL dsHvPP2A inhibited ovarian development and egg production compared to the control group, preventing normal egg-laying.
ConclusionThis investigation emphasizes the essential role of HvPP2A in the survival and reproduction of H. vigintioctopunctata, suggesting HvPP2A could be a promising target gene for RNAi-based management strategies in this species.
-
Keywords:
- Henosepilachna vigintioctopunctata /
- HvPP2A /
- RNA interference /
- survival /
- reproduction
-
茄二十八星瓢虫Henosepilachna vigintioctopunctata属于鞘翅目Coleoptera瓢虫科Coccinellida),俗称酸浆瓢虫,主要在茄子、马铃薯、番茄等茄科蔬菜上为害。该虫成虫和幼虫以茄科蔬菜的叶片为食,重度为害时,叶肉被完全取食,只留下叶脉,导致植株死亡(季月琴等,2008)。目前,化学防治仍是有效防治茄二十八星瓢虫的主要手段。然而,过度、频繁、不合理使用化学农药会造成环境污染和农产品质量安全等问题。因此,寻找可替代化学防治的其他防治策略对于实现茄二十八星瓢虫的绿色防控具有重要意义。
RNA干扰(RNA interference,RNAi)是一种基因转录后沉默的机制(Fire et al.,1998)。相较于传统的害虫防治方法,RNAi技术展现出诸多优势,如具有物种特异性,能够精准地针对目标害虫,减少对非目标生物的影响。此外,RNAi技术在害虫防治中的主要成分为dsRNA,易于在环境中降解,且无毒性和残留,因此被视为一种新型、绿色环保的害虫治理手段,具有巨大的应用潜力。近年来,RNAi技术在害虫防治领域受到广泛关注,该技术通过干扰控制害虫发育或影响其取食、交配等等关键基因,有效阻碍害虫的正常生长、取食和繁殖等过程,从而导致害虫死亡,达到控制害虫的目的(Yan et al.,2020;Guo et al.,2021;Lü et al.,2021;Yan et al.,2021;Chen et al.,2023;Guo et al.,2023)。2023年12月,美国环保署(FDA)批准了由GreenLight Biosciences公司发明的Ledprona核酸生物农药,Ledprona是一种可喷洒的dsRNA产品,利用“沉默”产生PSMB5蛋白所需的马铃薯甲虫Leptinotarsa decemlineata基因来杀死害虫。‘RNA杀虫剂应用于田间’入选了2024年Science年度十大科学突破之一。Ledprona的田间应用加快了使用RNAi技术进行害虫防控的研发速度,为田间害虫绿色防控提供新方法。
蛋白质的磷酸化和去磷酸化过程是真核生物调控生命活动的重要分子机制之一。丝氨酸/苏氨酸蛋白磷酸酶2A(PP2A)是PPP(Phosphoprotein phosphatase)家族的重要成员,是一种异源三聚体磷酸酶,由1个催化亚基、1个调节亚基和1个结构亚基组成。核心酶由催化亚基C和结构亚基A组成的二聚体形成。与调节亚基B结合后,形成三聚体ABC,即全酶。B亚基具有多个亚基家族,至少包含26个成员,核心酶与不同的调节亚基B结合可形成多样的PP2A全酶,决定了PP2A对底物和功能的特异性(丘韶鑫等,2024;Janssens and Goris,2001)。在蛋白质的磷酸化和去磷酸化过程中,蛋白磷酸酶扮演着催化蛋白去磷酸化的关键角色,参与调节细胞周期、基因转录、细胞生长发育等多种重要生理过程,对维持生物体功能至关重要。Hu等(2020)指出,BmPP2A基因与抗家蚕核型多角体病毒功能相关,参与家蚕的抗病毒防御过程。Tian和Xu(2013)发现,PP2A-Aa基因在棉铃虫Helicoverpa armigera中的高表达与光周期感应阶段的滞育诱导相关。此外,Gu等(2017)发现PP2A在家蚕Bombyx mori胚胎滞育中起重要作用。总之,PP2A在昆虫中,尤其是农业害虫中功能的报道相对较少,有待进一步研究。
本研究旨在初步探究HvPP2A在茄二十八星瓢虫发育和生殖中的功能,为开发防控茄二十八星瓢虫的生物农药奠定理论基础。
1. 材料与方法
1.1 供试植物与虫源
供试昆虫茄二十八星瓢虫,2018年采集自广东省广州市华南农业大学校园内的龙葵(Lü et al.,2018),并将该种群用茄子叶片继代饲养在实验室培养箱中(设置温度(25 ± 1)℃,相对湿度70%~80%,光周期L∶D=14∶10)。
1.2 HvPP2A基因在茄二十八星瓢虫不同发育阶段的表达模式
1.2.1 样品收集
收集茄二十八星瓢虫不同发育阶段的8种样品,包括卵(20粒),1龄幼虫(10头),2龄幼虫(5头),3龄幼虫(3头),4龄幼虫(2头),蛹(2头),雌雄成虫(各2头)。4种组织样品,即中肠、脂肪体、表皮和马氏管均解剖自4龄幼虫,每个重复解剖15头4龄幼虫。每种样品均设置3个生物学重复。所有样品都经过液氮进行快速冰冻,并存放于-80℃的冰箱中备用。
1.2.2 总RNA的提取与cDNA的合成
采用TRIzol法提取总RNA。提取得到的RNA样品使用10~100 µL的ddH2O进行洗脱处理,并通过1.5%琼脂糖凝胶电泳检验其质量。使用NanoDrop OneC分光光度计(Thermo Fisher Scientific,Waltham,MA United States)测定RNA的浓度,所有样本RNA的OD260/OD230值在1.8~2.2之间。总RNA使用试剂盒PrimeScriptTM RT reagent Kit with gDNA Eraser(Takara,大连)进行反转录合成cDNA,并将合成的cDNA稀释10倍后用于后续的PCR、RT-qPCR以及dsRNA合成试验。
1.2.3 HvPP2A基因在茄二十八星瓢虫不同发育阶段和不同组织中的表达模式
根据HvPP2A基因序列设计RT-qPCR引物,探究其在茄二十八星瓢虫不同发育阶段和组织中的表达量,选取RPS18作为内参基因(Lü et al.,2018),并进行靶基因相对表达量的分析(表 1)。RT-qPCR反应体系(总体积15 μL)包括:cDNA模板1.0 μL,正反向引物各0.625 μL(10 μmol/L),TB Green 7.5 μL,ddH2O 5.25 μL。RT-qPCR反应程序:95℃ 30 s;95℃ 5 s,60℃ 30 s,40个循环;熔解曲线分析阶段(65~95℃,每升温0.5℃检测一次荧光信号,每次持续5 s)。每个样品设置3个重复,最终的结果计算采用2-△△Ct法计算(Livak and Schmittgen,2001)。
表 1 本试验所用的引物Table 1 Primers used in this experiment引物名称Primer name 引物序列(5'- 3')Primer sequence RT-qPCR-HvPP2A F:TGTACCAGATCAGGGTCTTT R:TTTGCTCACAACCTCAGC dsHvPP2A F:AATACGACTCACTATAGGGCTTCTTACTCCGTGGCAACC R:TAATACGACTCACTATAGGGTGACATCATTGCTCCTGCAT 1.3 饲喂dsHvPP2A的RNAi效应
1.3.1 dsRNA的体外合成
基于已获取的HvPP2A的CDS区序列,设计dsRNA特异性引物(表 1)。PCR反应体系总体积为100 μL,包括:ddH2O 36 μL,2× PCR Taq PCR SuperMix 50 μL,cDNA/GFP质粒6 μL,上下游引物各4 μL(10 μmol/L)。PCR反应条件为:94℃预变性3 min;94℃变性30 s,59℃退火30 s,72℃延伸1 min,共35个循环;72℃延伸10 min。
使用DNA纯化回收试剂盒(天根公司,北京)回收上述两种PCR产物作为合成dsRNA的模版。利用HiScribe® T7 Quick High Yield RNA合成试剂盒(New England Biolabs,MA,USA)合成dsRNA。dsRNA的合成体系为:NTP混合缓冲液10 μL,T7 RNA聚合酶2 μL,PCR回收产物1 μg,用ddH2O补足20 μL。将混合后的体系置于37℃反应2 h。反应结束后加入DNase I 2 μL和ddH2O 30 μL混匀,37℃反应15 min去除残留的模版DNA和单链RNA,然后纯化dsRNA。将dsRNA溶解于20 μL ddH2O后,在-20℃冰箱中保存,得到dsHvPP2A和dsGFP。使用1%琼脂糖凝胶电泳检测dsRNA质量,使用NanoDrop OneC分光光度计测定dsRNA浓度。
1.3.2 饲喂法RNAi的干扰效率
将1龄幼虫(孵化后24 h)饥饿处理12 h后进行饲喂试验。使用浓度为200 ng/µL的dsHvPP2A溶液浸泡直径为12 mm的叶盘,而对照组则使用浓度为100 ng/µL的dsGFP溶液浸泡叶盘,每个培养皿含10头1龄幼虫作为1个重复,每个处理组设置3个重复。试验开始时,每个培养皿放置3片叶盘,第2天更换新的dsRNA处理过的叶盘。持续处理2 d后,提供未经dsRNA浸泡的新鲜叶片。
将3龄幼虫(蜕皮后24 h)饥饿处理12 h后进行饲喂试验。使用浓度为100 ng/µL的dsHvPP2A溶液浸泡直径为12 mm的叶盘,而对照组则使用浓度为100 ng/µL的dsGFP溶液浸泡叶盘。每个培养皿中放置10头3龄幼虫作为1个重复,每个处理组设置3个重复。每个培养皿放置10片叶盘,处理流程与1龄幼虫相似。
在饲喂dsRNA后的2 d和4 d分别收集处理组和对照组的1龄和3龄幼虫。每3头1龄幼虫作为1个生物学重复,2头3龄幼虫作为1个生物学重复,每个样品均有3个重复。随后,提取这些样本的总RNA,进行反转录以合成cDNA,将cDNA稀释10倍后作为后续RT-qPCR的模版。总RNA提取和cDNA的合成方法遵循1.2.2节的描述,HvPP2A基因的沉默效率检测参考1.2.3节的方法。
1.3.3 饲喂dsRNA对茄二十八星瓢虫的存活率和生长发育的影响
选取dsRNA对茄二十八星瓢虫的1龄幼虫、3龄幼虫和雌成虫进行生物测定。
对于1龄幼虫处理组,分别使用不同浓度的dsHvPP2A溶液和dsGFP溶液(50、100、200、500 ng/µL)浸泡直径12 mm的叶盘,每个培养皿含10头1龄幼虫(孵化后24 h)作为1个重复,每个处理组设置3个重复。按照1.3.2节的流程进行处理。从饲喂dsRNA开始,连续观察10 d,每24 h记录每个培养皿中幼虫的死亡情况和表型变化。使用Canon数码相机(Tokyo,Japan)记录dsRNA处理下1龄幼虫的发育情况。
对于3龄幼虫处理组,使用浓度为100 ng/µL的dsHvPP2A溶液浸泡直径为12 mm的叶盘,而对照组则使用浓度为100 ng/µL的dsGFP溶液浸泡叶盘。每个培养皿中放置10头3龄幼虫(孵化后24 h)作为1个重复,每个处理组设置3个重复。按照1.3.2节的流程进行处理。同样,也对处理下3龄幼虫的发育情况进行拍摄和记录。为进行表型研究,同时使用浓度100 ng/μL的dsHvPP2A和dsGFP处理3龄幼虫(处理流程同上),到饲喂后第3 d(即3龄幼虫末期)解剖表皮,并进行表皮的H & E染色(苏木精-伊红染色法)。
对于成虫处理组,采用浓度为1 000 ng/µL的dsHvPP2A和dsGFP进行饲喂。每个培养皿中置1头雌成虫(羽化后3 d内)作为1个重复,每个处理组设置20个重复。雌成虫饥饿处理12 h后,开始饲喂试验。试验开始时,使用移液枪滴加1 µL的dsRNA供瓢虫取食,取食后用新鲜的茄子叶片继续饲喂,第3天再次进行同样的定量饲喂。从饲喂dsRNA开始,进行试验观察,记录雌成虫的死亡率。同时,为了进行表型研究,使用浓度1 000 ng/μL的dsHvPP2A和dsGFP分别处理雌成虫各10头(试验流程同上),在雌成虫定量饲喂第3天,将1头未经处理的雄虫和1头处理过的试验组或对照组的雌虫配对在单个培养皿中(试验组和对照组各配对10组),并提供新鲜的未经处理的叶片。从饲喂dsRNA开始的第10天,解剖经过dsGFP和dsHvPP2A处理后的雌成虫的卵巢,以评估dsRNA摄入对卵巢发育的影响。
所有生测试验均在直径5 cm,高度1.3 cm的培养皿中进行,在培养皿内放置有滤纸和湿棉球。培养皿置于人工气候箱(设置温度(25 ± 1)℃,相对湿度70%~80%,光周期L∶D=14∶10)。
1.4 数据分析
使用单因素方差分析计算HvPP2A在茄二十八星瓢虫不同发育阶段和组织间的表达差异水平(Tukey检验,P < 0.05),并用独立样本t检验对茄二十八星瓢虫取食dsHvPP2A后不同天数的相对基因表达量进行显著性差异分析(P < 0.05)。通过Cox回归建立幼虫和成虫死亡率的生存曲线。
2. 结果与分析
2.1 HvPP2A在茄二十八星瓢虫不同发育阶段及4龄幼虫不同组织中的表达模式
在不同发育阶段中,HvPP2A在雌虫中的表达量最高,其次是卵和雄虫(F7, 16 = 10.737,P < 0.0001)(图 1-A)。在不同组织中,HvPP2A在中肠的表达量最高,其次是马氏管和表皮,而在脂肪体中的表达量最低(F3, 8 = 37.071,P < 0.0001)(图 1-B)。
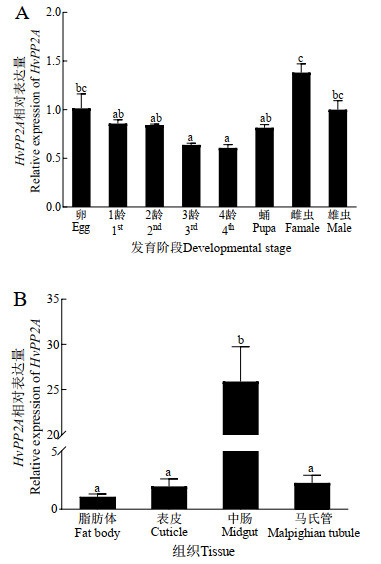 图 1 HvPP2A基因在茄二十八星瓢虫不同发育阶段(A)和不同组织(B)中的相对表达量注:图中显示的值为平均值±标准误,不同字母表示不同发育阶段或不同组织之间基因表达量差异显著(P < 0.05)。图 2同。Fig. 1 Relative expression levels of HvPP2A in different development stages (A) and tissues (B) of Henosepilachna vigintioctopunctataNote: Data in the figure were mean ± SE, Different letters above bars indicated significant difference in the gene expression level among different developmental stages or different tissues (P < 0.05). Same to Fig. 2.
 下载:
全尺寸图片
2.2 HvPP2A基因的干扰效率
与对照组相比,取食200 ng/µL的dsHvPP2A后,1龄幼虫体内HvPP2A基因在的相对表达水平在第2天和第4天均显著下降。在第2天,HvPP2A基因的表达量下降了3.2倍(t (4) = 137.371,P < 0.01);在第4天,HvPP2A基因的表达量下降了4.5倍(t (4) = 282.120,P < 0.01)(图 2-A)。取食100 ng/µL的dsHvPP2A后,3龄幼虫的HvPP2A基因表达量在第2天下降了9.21倍(t (4) = 40.362,P < 0.01),在第4天时下降了3.76倍(t (4) = 12.256,P < 0.01)(图 2-B)。
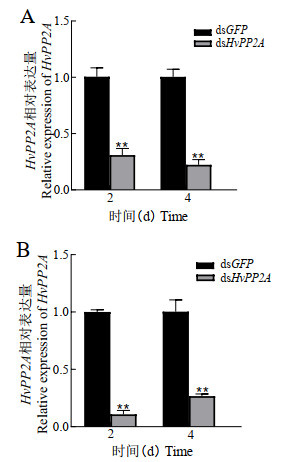 图 2 1龄幼虫(A)和3龄幼虫(B)中HvPP2A的RNAi沉默效率Fig. 2 Silencing efficiency of HvPP2A in the 1st instar larvae (A) and 3rd instar larvae (B)下载:
全尺寸图片
2.3 dsHvPP2A对茄二十八星瓢虫存活率的影响
与对照组相比,处理组dsHvPP2A的浓度为50 ng/µL时,对1龄幼虫的死亡率达到82.5%;而当处理组分别使用100 ng/µL、200 ng/µL和500 ng/µL的dsHvPP2A浓度时,致死率均为100%(图 3-A)。对3龄幼虫饲喂100 ng/µL的dsHvPP2A后,饲喂第6天达到了100%的死亡率(图 3-B)。在使用100 ng/µL的dsHvPP2A饲喂雌成虫后,到处理后第10天时,处理组的死亡率达到44%(图 3-C)。
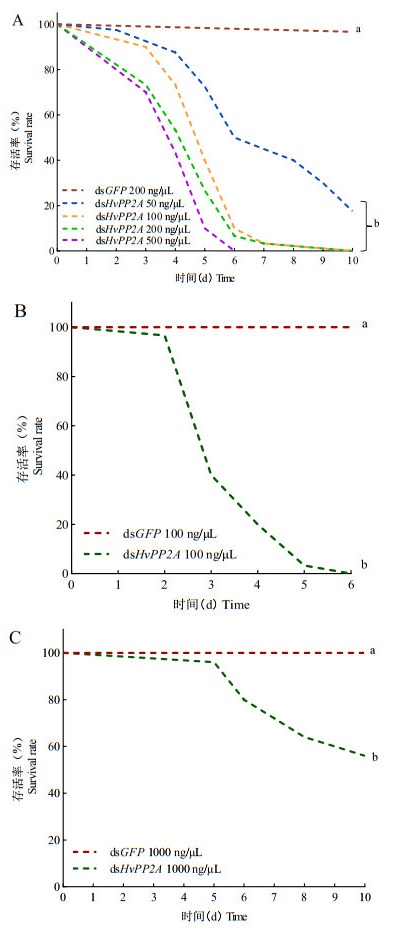 图 3 沉默HvPP2A对1龄幼虫(A)、3龄幼虫(B)及成虫(C)存活率的影响注:不同小写字母表示不同浓度dsRNA溶液处理后,幼虫最终存活差异显著(P < 0.05)。Fig. 3 Effects of HvPP2A silencing on the survival rate of the 1st instar larvae (A), the 3rd instar larvae (B), and female adults (C)Note: Difference lowercase letters above curves indicated significant difference in the survival rate among different treatments with different concentrations of dsRNA solutions (P < 0.05).下载:
全尺寸图片
2.4 dsHvPP2A对茄二十八星瓢虫生长发育的影响
当用200 ng/µL dsRNA处理1龄幼虫时,发现从饲喂dsHvPP2A的第3天开始,对照组的幼虫正常进入2龄阶段(图 4-A),而处理组中的幼虫无法正常蜕皮停留在1龄阶段,最终死亡(图 4-B)。同样,在3龄幼虫开始饲喂100 ng/µL dsHvPP2A的第7天,对照组的幼虫正常进入4龄阶段并化蛹(图 5-A),而处理组的幼虫仍停留在3龄阶段(图 5-B)。
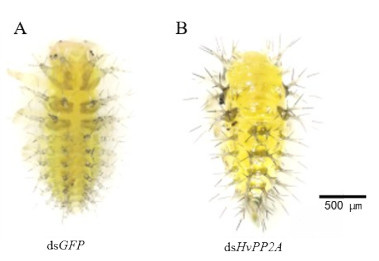 图 4 沉默HvPP2A对1龄幼虫发育的影响Fig. 4 Effect of HvPP2A silencing on development of the 1st instar larvae下载:
全尺寸图片
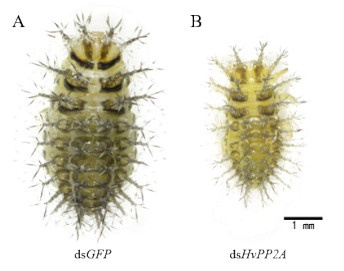 图 5 沉默HvPP2A对3龄幼虫发育的影响Fig. 5 Effect of HvPP2A silencing on development of the 3rd instar larvae下载:
全尺寸图片
用100 ng/µL dsHvPP2A处理3龄幼虫,3 d后对其腹部表皮进行H & E染色。在对照组中,新旧表皮的分层清晰可见,新表皮逐步形成(图 6-A);而在处理组中,新表皮形成受抑制,旧表皮无法正常分离,导致无法正常蜕皮(图 6-B)。
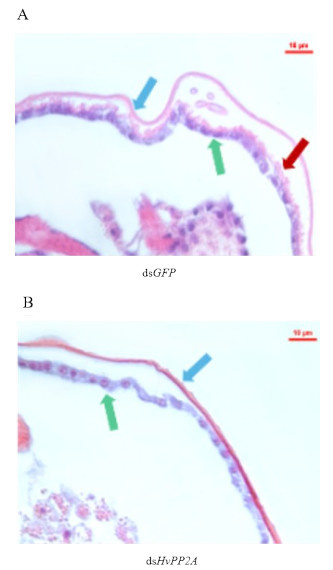 图 6 沉默HvPP2A对3龄幼虫表皮发育的影响注:蓝色箭头所指为旧表皮,红色箭头所指为新表皮,绿色箭头所指为表皮细胞。Fig. 6 Effect of HvPP2A silencing on the epidermal development of the 3rd instar larvaeNote: The blue arrow pointed to the old epidermis, the red arrow pointed to the new epidermis, and the green arrow pointed to the epidermal cells.下载:
全尺寸图片
2.5 dsHvPP2A对茄二十八星瓢虫生殖的影响
通过RNAi处理雌成虫后的解剖观察显示对照组雌虫的卵巢发育正常(图 7-A),而处理组雌虫的卵巢出现明显的发育异常和萎缩,且未观察到明显的卵子形成(图 7-B)。
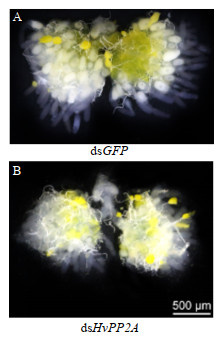 图 7 沉默HvPP2A基因表达对卵巢发育的影响Fig. 7 Effect of HvPP2A silencing on the ovarian development下载:
全尺寸图片
3. 结论与讨论
本研究发现干扰茄二十八星瓢虫中HvPP2A基因的表达后会引起幼虫的生长发育和蜕皮受阻,最终导致死亡,在雌成虫中干扰该基因会影响卵巢发育和卵子形成的过程,从而导致其生殖能力降低,表明HvPP2A基因可作为茄二十八星瓢虫RNAi绿色防控的潜在靶标基因。
PP2A是一种存在于动物和植物细胞内的丝氨酸/苏氨酸磷酸酶,通常作为异源三聚体在细胞内执行多种生物学功能。本研究通过组织表达谱分析发现,HvPP2A在不同组织中表达呈现显著的组织特异性。在4龄幼虫中,HvPP2A在中肠内的表达量最高。Hu等(2020)发现BmPP2A基因在家蚕中肠内也具有高表达量。Berry和Gehring(2000)在果蝇胚胎发育中的原位杂交研究表明,PP2A在整个胚胎发育过程中起关键作用,尤其在胚胎发育早期阶段。Gu等(2017)的进一步研究,PP2A在家蚕胚胎发育中也发挥重要功能。在茄二十八星瓢虫不同发育阶段中,HvPP2A在雌成虫中的表达量最高,推测其可能与雌虫在卵子形成过程有关。
本研究发现干扰茄二十八星瓢虫幼虫中HvPP2A的表达,可导致幼虫蜕皮受阻而死亡。这与本团队前期研究茄二十八星瓢虫中蜕皮激素和多巴胺通路基因功能时,沉默HvFTZ-F1和HvTH基因后幼虫的表型类似(Liu et al.,2021;Chen et al.,2022)。例如,沉默4龄幼虫中HvFTZ-F1基因的表达会导致幼虫体内的蜕皮激素含量降低,无法化蛹而全部死亡。其腹部表皮H & E染色处理显示,dsHvFTZ-F1处理组幼虫进入预蛹期后无法形成新表皮(Liu et al.,2021)。本团队前期的研究发现,在茄二十八星瓢虫雌成虫中,HvFTZ-F1被干扰之后,导致卵巢出现萎缩、繁殖能力明显下降(Liu et al.,2021)。沉默HvTH后对雌成虫的产卵量无变化,但卵孵化率显著降低(Chen et al.,2022;Liu et al.,2022)。本研究中,发现沉默雌虫中HvPP2A的表达对卵巢发育和卵子形成至关重要。干扰雌虫中HvPP2A的表达,能够引起强烈的RNAi反应,导致其卵巢发育异常且无法形成卵子。Yuan等(2020)研究发现在果蝇和家蚕中PP2A与脂肪体中的胰岛素样生长因子信号通路(IIS)紧密相关。所以,HvPP2A可能通过影响蜕皮激素合成或信号传导途径,在茄二十八星的蜕皮和发育过程中发挥关键作用,同时可能作为IIS通路的关键调节因子,调控该信号通路的活性,从而进一步调控茄二十八星瓢虫的生长发育。
基于RNAi技术的害虫防治具有高度特异性、安全性和高效性的特点,是一种新型的绿色害虫防控技术,具有广阔的应用前景。在病虫害防控领域,RNAi技术被称为“农药史上的第三次革命”。近年来,RNAi技术在农业害虫防治领域的研究取得了较大进展。Dong等(2022)研究发现,质体介导RNAi技术对刺吸式害虫桃蚜Myzus persicae具有显著的防控效果,质体转基因植物对桃蚜表现出显著抗性。Xia等(2021)通过转基因番茄植物表达dsBtPMaT1,破坏了烟粉虱Bemisia tabaci的解毒能力,导致其死亡率高达100%。另外,可喷洒的dsRNA产品的登记更是加快了RNAi技术防控害虫的应用。作为对饲喂法RNAi方法敏感的茄二十八星瓢虫(骆旭铭等,2022;王亚洁等,2022;Guo et al.,2023),很有希望应用RNAi技术进行防控。
本研究首次报道了沉默HvPP2A基因表达影响茄二十八星瓢虫1龄和3龄幼虫的生长发育和雌成虫卵巢发育。因此,HvPP2A基因是一个潜在的靶标基因,可创制RNA生物农药用于防控茄二十八星瓢虫。
-
图 1 HvPP2A基因在茄二十八星瓢虫不同发育阶段(A)和不同组织(B)中的相对表达量
注:图中显示的值为平均值±标准误,不同字母表示不同发育阶段或不同组织之间基因表达量差异显著(P < 0.05)。图 2同。
Fig. 1 Relative expression levels of HvPP2A in different development stages (A) and tissues (B) of Henosepilachna vigintioctopunctata
Note: Data in the figure were mean ± SE, Different letters above bars indicated significant difference in the gene expression level among different developmental stages or different tissues (P < 0.05). Same to Fig. 2.
下载:
全尺寸图片
图 2 1龄幼虫(A)和3龄幼虫(B)中HvPP2A的RNAi沉默效率
Fig. 2 Silencing efficiency of HvPP2A in the 1st instar larvae (A) and 3rd instar larvae (B)
下载:
全尺寸图片
图 3 沉默HvPP2A对1龄幼虫(A)、3龄幼虫(B)及成虫(C)存活率的影响
注:不同小写字母表示不同浓度dsRNA溶液处理后,幼虫最终存活差异显著(P < 0.05)。
Fig. 3 Effects of HvPP2A silencing on the survival rate of the 1st instar larvae (A), the 3rd instar larvae (B), and female adults (C)
Note: Difference lowercase letters above curves indicated significant difference in the survival rate among different treatments with different concentrations of dsRNA solutions (P < 0.05).
下载:
全尺寸图片
图 4 沉默HvPP2A对1龄幼虫发育的影响
Fig. 4 Effect of HvPP2A silencing on development of the 1st instar larvae
下载:
全尺寸图片
图 5 沉默HvPP2A对3龄幼虫发育的影响
Fig. 5 Effect of HvPP2A silencing on development of the 3rd instar larvae
下载:
全尺寸图片
图 6 沉默HvPP2A对3龄幼虫表皮发育的影响
注:蓝色箭头所指为旧表皮,红色箭头所指为新表皮,绿色箭头所指为表皮细胞。
Fig. 6 Effect of HvPP2A silencing on the epidermal development of the 3rd instar larvae
Note: The blue arrow pointed to the old epidermis, the red arrow pointed to the new epidermis, and the green arrow pointed to the epidermal cells.
下载:
全尺寸图片
图 7 沉默HvPP2A基因表达对卵巢发育的影响
Fig. 7 Effect of HvPP2A silencing on the ovarian development
下载:
全尺寸图片
表 1 本试验所用的引物
Table 1 Primers used in this experiment
引物名称Primer name 引物序列(5'- 3')Primer sequence RT-qPCR-HvPP2A F:TGTACCAGATCAGGGTCTTT R:TTTGCTCACAACCTCAGC dsHvPP2A F:AATACGACTCACTATAGGGCTTCTTACTCCGTGGCAACC R:TAATACGACTCACTATAGGGTGACATCATTGCTCCTGCAT -
Berry M, Gehring W. Phosphorylation status of the SCR homeodomain determines its functional activity: essential role for protein phosphatase 2A, B' [J]. EMBO Journal, 2000, 19(12): 2946-2957. doi: 10.1093/emboj/19.12.2946 Chen SM, Luo XM, Nanda S, et al. RNAi-based biopesticides against 28-spotted ladybeetle Henosepilachna vigintioctopunctata does not harm the insect predator Propylea japonica [J]. Journal of Agricultural and Food Chemistry, 2023, 71(7): 3373-3384. doi: 10.1021/acs.jafc.2c08473 Chen SM, Nanda S, Guo MJ, et al. Tyrosine hydroxylase invloves in cuticle tanning and reproduction in the 28-spotted potato ladybeetle, Henosepilachna vigintioctopunctata [J]. Pest Management Science, 2022, 78(9): 3859-3870. doi: 10.1002/ps.6980 Dong Y, Wu MT, Zhang Q, et al. Control of a sap-sucking insect pest by plastid-mediated RNA interference [J]. Molecular Plant, 2022, 15(7): 1176-1191. doi: 10.1016/j.molp.2022.05.008 Fire A, Xu SQ, Montgomery MK, et al. Potent and specific genetic interference by double-stranded RNA in Caenorhabditis elegans [J]. Nature, 1998, 391(6669): 806-811. doi: 10.1038/35888 Gu SH, Chen CH, Lin PL, et al. Role of protein phosphatase 2A in PTTH-stimulated prothoracic glands of the silkworm, Bombyx mori [J]. General and Comparative Endocrinology, 2019, 274: 97-105. doi: 10.1016/j.ygcen.2019.01.009 Gu SH, Hsieh HY, Lin PL. Regulation of protein phosphatase 2A during embryonic diapause process in the silkworm [J]. Journal of Insect Physiology, 2017, 103: 117-124. doi: 10.1016/j.jinsphys.2017.09.002 Guo MJ, Gao R, Nanda S, et al. RNAi assays in the striped flea beetle (Phyllotreta striolata) suggest Psγ-COPI and PsArf1COPI as potential molecular targets for pest control [J]. Pesticide Biochemistry and Physiology, 2023, 193: 105428. doi: 10.1016/j.pestbp.2023.105428 Guo MJ, Nanda S, Yang CX, et al. Oral RNAi assays in Henosepilachna vigintioctopunctata suggest HvSec23 and HvSar1 as promising molecular targets for pest control [J]. Entomologia Generalis, 2023, 43(1): 147−155. doi: 10.1127/entomologia/2023/1712 Guo W, Guo MJ, Yang CX, et al. RNA interference‐mediated silencing of vATPase subunits A and E affect survival and development of the 28‐spotted ladybeetle, Henosepilachna vigintioctopunctata [J]. Insect Science, 2021, 28(6): 1664-1676. doi: 10.1111/1744-7917.12899 Hu ZG, Dong ZQ, Dong FF, et al. Identification of a PP2A gene in Bombyx mori with antiviral function against B. mori nucleopolyhedrovirus [J]. Insect Science, 2020, 4: 687-696. Janssens V, Goris J. Protein phosphatase 2A: a highly regulated family of serine/threonine phosphatases implicated in cell growth and signalling [J]. Biochemical Journal, 2001, 353(3): 417-39. doi: 10.1042/bj3530417 季月琴, 魏栋梁, 蔡苏进. 沿海地区茄二十八星瓢虫发生规律与综防技术[J]. 长江蔬菜, 2008, 19: 15 Ji YQ, Wei DL, Cai SJ. Occurrence law and comprehensive control technology of Henosepilachna vigintioctopunctata in coastal areas [J]. Journal of Changjiang Vegetables, 2008, 19: 15. Liu ZQ, Nanda S, Yang CX, et al. RNAi suppression of the nuclear receptor FTZ-F1 impaired ecdysis, pupation, and reproduction in the 28-spotted potato ladybeetle, Henosepilachna vigintioctopunctata [J]. Pesticide Biochemistry and Physiology, 2022, 182: 105029. doi: 10.1016/j.pestbp.2021.105029 Lü J, Chen SM, Guo MJ. Selection of appropriate reference genes for RT-qPCR analysis in Propylea japonica (Coleoptera: Coccinellidae) [J]. PLoS ONE, 2018, 13(11): e0208027. doi: 10.1371/journal.pone.0208027 Lü J, Yang CX, Liu ZQ. Dietary RNAi toxicity assay suggests α and γ subunits of HvCOPI as novel molecular targets for Henosepilachna vigintioctopunctata, an emerging coccinellid pest [J]. Journal of Pest Science, 2021, 94(4): 1-14. 骆旭铭, 陈诗敏, 潘广, 等. 饲喂法RNAi介导的HvCHS1基因沉默抑制茄二十八星瓢虫的存活和发育[J]. 中国生物防治学报, 2022, 38(5): 1083-1093 Luo XM, Chen SM, Pan G, et al. Silencing of chitin synthase 1 (HvCHS1) by dietary RNAi inhibits the survival and development of the 28-spotted potato ladybird, Henosepilachna vigintioctopunctata [J]. Chinese Journal of Biological Control, 2022, 38(5): 1083-1093. 丘韶鑫, 杨发恒, 何经纬, 等. 植物中PP2A功能研究进展[J]. 植物生理学报, 2024, 60(3): 430-440 Qiu SX, Yang FH, He JW, et al. Research advances on function of PP2A in plants [J]. Plant Physiology Journal, 2024, 60(3): 430-440. Tian R, Xu WH. High expression of PP2A-Aa is associated with diapause induction during the photoperiod-sensitive stage of the cotton bollworm, Helicoverpa armigera [J]. Journal of Insect Physiology, 2013, 59(6): 588-594. doi: 10.1016/j.jinsphys.2013.03.006 王亚洁, 刘卓琦, 李华丽, 等. RNAi沉默HvFTZ-F1对茄二十八星瓢虫幼虫存活及发育的影响[J]. 中国生物防治学报, 2022, 38(5): 1075-1082 Wang YJ, Liu ZQ, Li LH, et al. The effects of silencing of HvFTZ-F1 via RNAi on the survival and development of the 28-spotted potato ladybird, Henosepilachna vigintioctopunctata larvae [J]. Chinese Journal of Biological Control, 2022, 38 (5): 1075-1082. Xia JX, Guo ZJ, Yang ZZ, et al. Whitefly hijacks a plant detoxification gene that neutralizes plant toxins [J]. Cell, 2021, 184(7): 1693-1705. doi: 10.1016/j.cell.2021.02.014 Yan S, Qian J, Cai C, et al. Spray method application of transdermal dsRNA delivery system for efficient gene silencing and pest control on soybean aphid Aphis glycines [J]. Journal of Pest Science, 2020, 93(1): 449-459. doi: 10.1007/s10340-019-01157-x Yan S, Ren BY, Shen J. Nanoparticle‐mediated double‐stranded RNA delivery system: A promising approach for sustainable pest management [J]. Insect Science, 2021, 28(1): 21-34. doi: 10.1111/1744-7917.12822 Yuan DW, Zhou S, Liu SN, et al. The AMPK-PP2A axis in insect fat body is activated by 20-hydroxyecdysone to antagonize insulin/IGF signaling and restrict growth rate [J]. Proceedings of the National Academy of Sciences of the United States of America, 2020, 117(17): 9292-9301.
