
Cloning of the cuticular protein genes in Hyphantria cunea and its response to HcNPV stress
-
摘要:
表皮在昆虫生长发育和抵御外界伤害和逆境中起重要作用。
目的本研究旨在克隆美国白蛾Hyphantria cunea表皮蛋白家族cuticular protein(CPs)基因,明确该家族基因特性和时空表达模式,阐明其对美国白蛾核型多角体病毒(Hyphantria cunea nucleopolyhedrovirus,HcNPV)的敏感性。
方法通过RT-PCR技术克隆HcCPs基因的全长cDNA序列,通过生物信息学在线网站和软件分析HcCPs基因的生物学特性;使用RT-qPCR技术检测HcCPs基因在美国白蛾不同发育阶段(卵、1~7龄幼虫、蛹和成虫)、不同组织(头、表皮、马氏管、前肠、中肠、后肠、丝腺、脂肪体、精巢和卵巢)中及不同浓度HcNPV胁迫下的表达水平。
结果美国白蛾7个CP基因的开放阅读框(ORFs)分别长291、492、720、426、657、408和942 bp,依次编码96、163、239、141、218、135和313个氨基酸;蛋白分子量为10.8~32.2 kDa,理论等电点为5.00~9.44;三级蛋白结构预测显示,HcCPs的三级结构含α螺旋、β折叠和无规则卷曲等结构。HcCPs系统发育树分析表明,HcCPs与鳞翅目昆虫的亲缘关系更近。RT-qPCR结果表明,HcCPs在美国白蛾头部、表皮、精巢及5~7龄中的表达水平较高,雄成虫中的表达量高于雌成虫。不同浓度HcNPV胁迫美国白蛾幼虫对表皮蛋白基因HcCPs的表达量具有时间效应,高浓度(2×10⁵ PIBs/mL)和低浓度HcNPV(2×103 PIBs/mL)胁迫下,HcCPs的转录水平呈现先升高再降低后升高的趋势;在2×103 PIBs/mL HcNPV的胁迫下,HcCP1、HcCP19、HcPCP36a和HcLCPA2B在120 h表达量最高,为对照组的38.94~4 994.20倍,HcPCP、HcL/PRCP66和HcLCP30在48 h表达量最高,依次为对照组的152.16倍、512.07倍和88.82倍;而在2×10⁵ PIBs/mL HcNPV的胁迫下,HcCP1在24 h表达量最高,是对照组的104.12倍,HcCP19、HcPCP36a和HcLCPA2B在120 h表达量最高,分别是对照组的67.93倍、6 824.97倍和12.66倍,HcPCP、HcL/PRCP66和HcLCP30在48 h表达量最高,分别是对照组的85.91倍、218.66倍和29.16倍,表明HcCPs基因积极应对HcNPV的感染。
结论这一系列结果证实了HcCPs在美国白蛾抵御HcNPV侵染过程中发挥重要作用,研究结果为阐明HcNPV对美国白蛾的感染机制奠定了基础。
-
关键词:
- 美国白蛾 /
- 表皮蛋白 /
- 时空表达 /
- 美国白蛾核型多角体病毒
Abstract:The insect cuticle plays critical roles in growth and development and provides protection against external injuries and environmental stresses.
AimThis study aimed to clone cuticular protein (CP) family genes from the fall webworm, Hyphantria cunea, characterize their sequence features and spatiotemporal expression patterns, and investigate their transcriptional responses to Hyphantria cunea nucleopolyhedrovirus (HcNPV) infection.
MethodsThe full-length cDNA sequences of HcCPs genes were cloned using RT-PCR, and their molecular and biological characteristics were analyzed using online bioinformatics tools and software. RT-qPCR was applied to detect the expression profiles of the HcCPs genes across different developmental stages (eggs, 1st–7th instar larvae, pupae and adults), in different tissues (head, cuticle, Malpighian tubules, foregut, midgut, hindgut, silk gland, fat body, testis and ovary), and following exposure to different concentrations of HcNPV.
ResultsThe open reading frames (ORFs) of the seven H. cunea CP genes were 291, 492, 720, 426, 657, 408 and 742 bp in length, encoding proteins of 96, 163, 239, 141, 218, 135 and 313 amino acids, respectively. Their predicted molecular weights ranged from 10.8 to 32.2 kDa, and theoretical isoelectric points ranged from 5.00 to 9.44. Tertiary structure prediction revealed that HcCP proteins contained mainly of α-helices, β-sheets and random coils. Phylogenetic analysis demonstrated that the HcCPs were most closely related to homologous proteins from other lepidopteran insects. RT-qPCR analysis revealed relatively high expression levels of the HcCP genes in the head, cuticle, testis and during the 5th to 7th larval instars. Their expression levels were also higher in male adults than in female adults. Exposure of H. cunea larvae to different concentrations of HcNPV resulted in time-dependent changes in HcCP expression. Under both high-dose (2 × 10⁵ PIBs/mL) and low-dose (2 × 10³ PIBs/mL) treatments, transcriptional levels initially increased, subsequently decreased, and then increased again. Following exposure to 2 × 10³ PIBs/mL HcNPV, HcCP1, HcCP19, HcPCP36a and HcLCPA2B reached their highest expression levels at 120 h, ranging from 38.94–4 994.20-fold relative to the control. In contrast, HcPCP, HcL/PRCP66 and HcLCP30 peaked at 48 h, with expression levels 152.16-, 512.07- and 88.82-fold higher than those of the control, respectively. Following exposure to 2 × 10⁵ PIBs/mL HcNPV, HcCP1 achieved its highest expression level at 24 h (104.12-fold of control). The expression levels of HcCP19, HcPCP36a and HcLCPA2B peaked at 120 h and were 67.93-, 6 824.97- and 12.66-fold higher than those of the control, respectively. Meanwhile, HcPCP, HcL/PRCP66 and HcLCP30 reached their highest expression levels at 48 h, at 85.91-, 218.66- and 29.16-fold those of controls, respectively. These findings indicate that HcCP genes are strongly involved in the response of H. cunea to HcNPV infection.
ConclusionCollectively, these results demonstrate that HcCPs play vital roles in the defense of H. cunea against HcNPV infection and provide a foundation for further elucidating the mechanisms underlying HcNPV infection in this insect.
-
昆虫表皮从卵期开始形成、分化,每个龄期结束到下个龄期开始均完成旧表皮的消解和新表皮的构建,直至昆虫生命周期结束。表皮是昆虫体驱最外层的组织,主要由表皮蛋白(Cuticular protein,CP)和几丁质组成(刘清明等,2010),是昆虫免疫的第一道防线(Nevile,1975;Vincent and Wegst,2004),在维持昆虫身体形态,减少水分蒸发以及抵御外界环境胁迫起着重要作用(刘晓健等,2019)。表皮蛋白是昆虫重要的结构蛋白,由上表皮、外表皮和内表皮组成(Moussian,2010),最早在黑腹果蝇Drosophila melanogaster中报道(Snyder et al.,1982)。作为昆虫表皮的主要组成元素和框架结构,表皮蛋白在昆虫的生长发育、蜕皮硬化、抗逆抗药、机械运动等生理活动中发挥重要作用(梁欣等,2014)。研究发现,表皮蛋白在昆虫对农药产生抗药性及抵抗病原感染过程中发挥关键作用(Awolola et al.,2009;Asano et al.,2013)。例如,灭幼脲处理后显著抑制美国白蛾表皮蛋白基因HcLCP-17的表达(Zhao et al.,2024);BtCP9和BtCP83过表达会增加烟粉虱Bemisia tabaci对吡虫啉的耐药性(He et al.,2023);家蚕Bombyx mori表皮蛋白基因BmCPH24基因缺陷导致突变体幼虫的内表皮更厚,对环境胁迫更敏感(Gao et al.,2017);Cph-like基因敲低后降低家蚕幼虫对质型多角体病毒(Bombyx mori cytoplasmic polyhedrosis virus,BmCPV)的抗性(Gan et al.,2013)。
美国白蛾Hyphantria cunea是我国重大外来入侵种,可危害林木、果树、行道树等多达49科108属的300余种植物(罗立平等,2018;孙守慧等,2021),对农林业造成严重危害,严重影响我国林业生态文明的建设。化学杀虫剂的高效性仍被作为防治美国白蛾的重要手段。然而,化学药剂的滥用使美国白蛾的抗药性增加,加大防控难度,甚至威胁人畜健康和生态平衡(Silva et al.,2011)。因此,应用昆虫病毒杀虫剂等环境友好型生物杀虫剂开始被广泛应用。
美国白蛾核型多角体病毒(Hyphantria cunea nucleopolyhedrovirus,HcNPV)是防控美国白蛾的理想生物杀虫剂(杨忠岐和张永安,2007),具有高致病性,专一性强等特点(于性跃等,1983;段彦丽等,2009;李红静等,2013)。研究发现,使用HcNPV防治美国白蛾2~3龄期幼虫效果最佳,防治效果高达到93.7%~99%(崔伦,2003)。感染HcNPV的美国白蛾幼虫体壁内表皮、外表皮结构变得松弛,内表皮结构异常,厚度不均匀且表皮细胞显著增厚,正常表皮细胞为单层细胞,而其增为2~4层,且排列无序,死亡后,表皮极薄一碰即破(吴立华等,2014)。因此,研究美国白蛾表皮蛋白基因的转录水平有助于揭示在HcNPV感染过程中产生机制,并为选择有效杀虫靶标提供理论基础。本研究根据实验室前期感染HcNPV的美国白蛾幼虫转录组数据(Sun et al.,2020),筛选到7个差异表达的表皮蛋白基因,并分别命名为HcCP1、HcCP19、HcPCP36a、HcLCPA2B、HcPCP、HcL/PRCP66和HcLCP30,对其进行克隆及生物信息学分析,利用RT-qPCR技术分析了其时空表达模式,并检测不同浓度HcNPV感染后HcCPs的转录水平,为后期研究美国白蛾表皮蛋白在NPV感染中的作用机制提供理论基础。
1. 材料与方法
1.1 供试昆虫及处理
1.1.1 供试昆虫
本研究所使用的人工饲料和美国白蛾卵块均购买于中国林业科学研究院森林生态环境与自然保护研究所(中国北京)。美国白蛾卵块用15%甲醛熏蒸消毒20 min后,置于相对湿度为75%、温度为(25 ± 1)℃、光周期为16 L∶8 D的人工恒温培养箱中,使用新鲜人工饲料进行饲养。
1.1.2 供试昆虫处理
分别将2×10³ PIBs/mL和2×105 PIBs/mL的HcNPV溶液均匀分布在(0.50 g;5 mm × 5 mm × 1 mm)的人工饲料中。将饥饿12 h的美国白蛾3龄幼虫接种上述含药的饲料中,待取食完全后放入正常饲料饲喂,同时以加入等量去离子水的人工饲料为对照,每个处理30头幼虫,重复6次,随机选取6、12、24、48、72、96和120 h的6头幼虫,液氮速冻后保存于-80℃用于RNA。
1.2 生物信息学分析
使用国家生物技术信息中心(National Center for Biotechnology Information,NCBI)的ORF founder(http://www.ncbi.nlm.nih.gov/gorf.html)预测基因开放阅读框(open reading frame,ORF);使用Prot Param (https://web.expasy.org/protparam/)分析蛋白质的基本理化性质;使用在线网站TMHMM2.0 Server(http://www.cbs.dtu.dk/services/TMHMM/)预测跨膜结构域;使用在线网站SignlP 5.0 Server(http://www.cbs.dtu.dk/services/SignalP)预测信号肽序列;使用Gene doc多重序列比对编辑器软件进行多序列比对;使用MEGA(7.0)中的临接法(Neighbor-Joining,N-J)构建系统发育树,各分支重复检验1 000次;使用在线工具iTOL(https://itol.embl.de/)对发育树进行美化;使用在线建模工具SWISS-MODEL(http://swissmodel.expasy.org/)分析蛋白质的三级结构。
1.3 实时荧光定量RT-qPCR
使用RNeasy Mini动物组织RNA提取试剂盒(Qiagen)提取美国白蛾不同发育阶段(卵、1~7龄幼虫、蛹和成虫)、7龄1 d幼虫不同组织(头、表皮、马氏管、前肠、中肠、后肠、丝腺、脂肪体、精巢和卵巢)以及HcNPV处理幼虫的总RNA。使用TaKaRa反转录试剂盒(PrimeScriptTM RT reagent Kit with gDNA)将RNA反转录合成cDNA。反应程序:42℃ 60 min,85℃ 5 s,16℃ 10 min。将cDNA稀释10倍备用。内参基因(EF1α和RPL13)和CPs引物序列见表 1。使用SYBR Green Realtime PCR Master mix试剂盒(Toyobo)检测相关基因的表达水平。反应体系为:2×SYBR premix Ex Taq酶10 μL,Primer mix(10 μmol/L)1 μL,cDNA 2 μL,ddH2O 7 μL。反应程序为:94℃预变性30 s,94℃变性12 s,58℃退火45 s,72℃延伸45 s,81℃读板1 s,45个循环,每个样品3次重复,以确保结果的可重复性。
表 1 RT-qPCR引物序列信息Table 1 RT-qPCR primer sequence information基因Gene 正向引物序列(5'-3')Forward primer sequence 反向引物序列(5'-3')Reverse primer sequence RPL13 GTTAGCTACACAGCTCCGTGG GCAGCAGTTGGGGCTTTAGT EF-1α ATGAAATCTCTGTGACCGGGG GCGGTGGTATCGACAAACGT CP1 ATGAAGAAGAATTTACACTCCG GGTATTGCCATTGTGGGATG CP19 ATGCGTAACTTACAAGTACTTGC GCTTTCCTTAGTATAACCTTGGT PCP36a ATGAAATTGTTAATCGTCTTAGCGA GAGCCTCTAAACCTGAATATGC LCPA2B ATGGACTCCAAGATTGTAGTATTC TCAACGACTGAGTAGGATCC PCP ATGCAGTCTATGGTTATCCTAG GTAAGCGGGTCCTGCGATATAA L/PRCP66 ATGTTTGCGAAGTTCGTTGT AGCAGCTACAACAGGTGTAG LCP30 CGTGTTTTTGGTACTTAGTCTG GTCATCAGCACTGGGATTGT 1.4 数据统计与分析
采用Excel 2010计算基因表达水平,根据2-△△Ct方法计算靶基因的相对表达水平,使用GraphPad Prism 8.0.1软件作图,运用IBM SPSS Statistics 22统计软件中单因素方差分析(one-way ANOVA)和独立样本T检验(Independent Samples T-Test)方法进行显著差异性分析(P < 0.05)。
2. 结果与分析
2.1 HcCPs基因克隆和分析
结合HcNPV胁迫美国白蛾转录组数据和RT-PCR分析验证获得的HcCPs基因cDNA全长序列,HcCPs基因ORFs为291~942 bp,编码96~313个氨基酸,蛋白分子量为1.08~32.2 kDa,理论等电点为5.00~9.44,其中HcCP1和HcL/PRCP66为碱性蛋白,其余均为酸性蛋白,不稳定系数为24.41~56.89,除HcLCPA2B外均为稳定蛋白;对HcCPs进行信号肽的预测,仅HcCP1无信号肽,HcCP19、HcPCP36a、HcLCPA2B、HcPCP、HcL/PRCP66和HcLCP30均有信号肽(表 2)。HcCPs蛋白跨膜结构域预测结果显示HcLCPA2B有1个跨膜结构域,第5~27位氨基酸为跨膜区;HcL/PRCP66有2个跨膜结构域,第5~27位和第88~110位氨基酸为跨膜区;其余5个基因均无跨膜结构域。HcCPs蛋白三级结构预测结果显示,HcCP1蛋白三级结构分布着无规则卷曲结构;HcCP19蛋白三级结构分布多个β折叠结构无规则卷曲结构;HcPCP蛋白三级结构由α螺旋结构和无规则卷曲结构构成;而HcPCP36a、HcLCPA2B、HcL/PRCP66和HcLCP30蛋白三级结构α螺旋配合多个β折叠卷曲盘旋形成立体的三维结构(图 1)。
表 2 HcCPs基因的理化性质Table 2 Physical and chemical characteristics of HcCPs基因名称
Gene name开放阅读框(bp)
ORF氨基酸数
Number of amino acids信号肽
Signal peptide分子量(kDa)
Molecular weight理论等电点
Theoretical pI不稳定系数
Instability indexCP1 291 96 否No 10.8 9.44 35.95 CP19 492 163 是Yes 18.2 6.28 24.41 PCP36a 720 239 是Yes 25.9 5.00 32.74 LCPA2B 426 141 是Yes 15.0 6.03 56.89 PCP 657 218 是Yes 22.1 6.52 31.28 L/PRCP66 408 135 是Yes 14.2 7.88 38.84 LCP30 942 313 是Yes 32.2 5.28 30.25 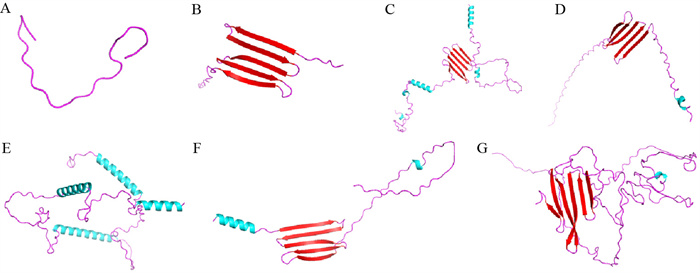 图 1 HcCPs蛋白质三级结构预测注:A~G,HcCP1、HcCP19、HcPCP36a、HcLCPA2B、HcPCP、HcL/PRCP66、HcLCP30。Fig. 1 Protein tertiary structure prediction of HcCPs
 下载:
全尺寸图片
2.2 HcCPs同源比对及进化树分析
通过NCBI BLASTP多序列比对显示(详见网络版增强出版材料附图 1):HcCP1和HcCP19均与庆网蛱蝶Melitaea cinxia似度最高,分别为60.27%和90%;HcPCP36a与烟草天蛾Manduca sexta相似性为100%;HcLCPA2B与粉纹夜蛾Trichoplusia ni相似性为100%;HcPCP与棉铃虫Helicoverpa armigera相似性为100%;HcL/PRCP66与斜纹夜蛾Spodoptera litura和粉纹夜蛾的相似性均为100%;HcLCP30与谷实夜蛾Helicoverpa zea和棉铃虫的相似性均为98%。分别选择与HcCPs序列相似程度高的7种鳞翅目昆虫的序列进行进化树分析(图 2),结果显示:HcCP1和HcCP19均与庆网蛱蝶亲缘关系最近;HcPCP36a、HcLCPA2B和HcPCP分别与烟草天蛾、粉纹夜蛾和棉铃虫聚为一支,亲缘关系最近;HcL/PRCP66与谷实夜蛾、斜纹夜蛾和粉纹夜蛾聚在一个分支上,亲缘关系更近;HcLCP30与谷实夜蛾和棉铃虫亲缘关系更近。
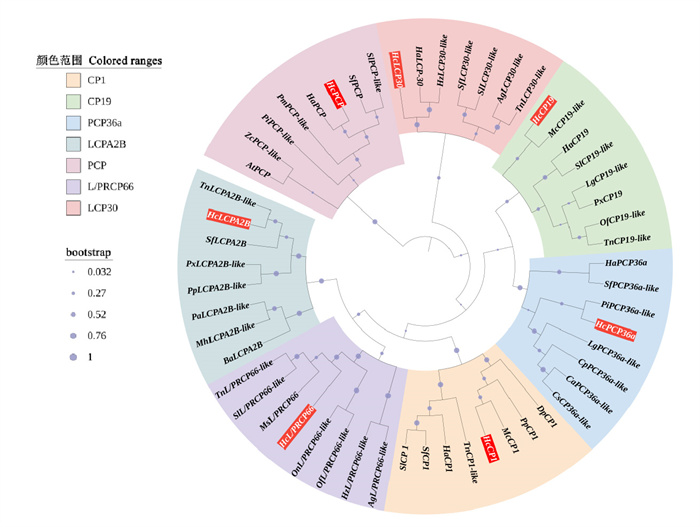 图 2 美国白蛾与其他昆虫CP基因系统进化树注:Hc,美国白蛾Hyphantria cunea Drury;Dp,君主斑蝶Danaus plexippus;Pp,玉带凤蝶Papilio polytes;Mc,庆网蛱蝶Melitaea cinxia;Tn,粉纹夜蛾Trichoplusia ni;Ha,棉铃虫Helicoverpa armigera;Sf,草地贪夜蛾Spodoptera frugiperda;Sl,斜纹夜蛾Spodoptera litura;Of,亚洲玉米螟Ostrinia furnacalis;Px,小菜蛾Plutella xylostella;Lg,大豆食心虫Leguminivora glycinivorella;Ms,烟草天蛾Manduca sexta;Cp,苹果蠹蛾Cydia pomonella;Ca,梨小食心虫Cydia amplana;Pn,暗脉菜粉蝶Pieris napi;Cc,红点豆粉蝶Colias croceus;Pi,印度谷螟Plodia interpunctella;Ba,丛林斜眼褐蝶Bicyclus anynana;Mh,环纹蝶Maniola hyperantus;Pa,斑点木蝶Pararge aegeria;Pm,金凤蝶Papilio machaon;Zc,菊黄花粉蝶Zerene cesonia;At,脐橙螟蛾Amyelois transitella;Ag,小蜡螟Achroia grisella;Hz,谷实夜蛾Helicoverpa zea;On,大丽花螟蛾Ostrinia nubilali。不同颜色代表不同CP基因;白色字体基因代表本研究鉴定的的7条CP基因。节点处的圆点为分支支持度。Fig. 2 Phylogenetic tree of CP genes of Hyphantria cunea and other insectsNote: Different colors represent different CP genes; The white font genes represented the 7 CP genes dentified in this study. The dots at the node indicated branch support.下载:
全尺寸图片
2.3 HcCPs基因发育和组织特异性
为探究7个表皮蛋白基因在不同龄期和组织中的表达情况,选取美国白蛾不同龄期、不同种组织样品,检测目的基因表达水平。结果显示,HcCPs基因在美国白蛾整个发育阶段均有表达,但表现出阶段特异性模式,HcCP1在美国白蛾7龄、雄蛹和雄成虫阶段表达量较高,依次为对照的24.14倍、20.64倍和14.62倍,在3龄表达量最低,仅为对照的79.81%(图 3-A);HcCP19和HcL/PRCP66均在美国白蛾5龄~7龄表达量较高,分别为对照的27.58~41.46倍和203.87~610.06倍(图 3-B、F);HcPCP36a、HcLCPA2B、HcPCP和HcLCP30分别在美国白蛾雄蛹、4龄、雄成虫和3龄表达达到峰值,分别为对照的360.51、204.80、93.43和257.23倍(图 3-C、D、E、G),HcPCP36a和HcLCPA2B均在2龄表达量最低,为对照的44.76%和8.29%(图 3-C、D),HcPCP和HcLCP30分别在雄蛹和雌蛹阶段表达量最低,仅为对照的0.17%和21.25%(图 3-F、G)。且HcCP1、HcLCPA2B和HcPCP在雄成虫中的表达水平显著高于雌成虫,推测其在美国白蛾雄性生殖过程起着重要作用(图 3)。
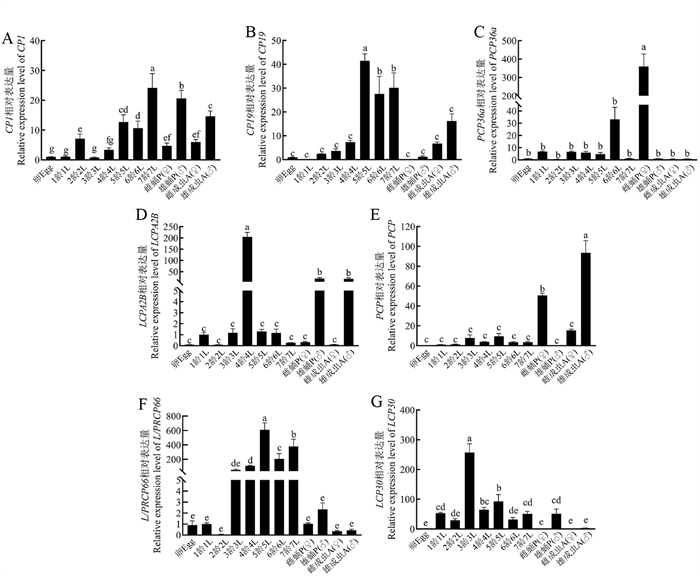 图 3 HcCPs基因在美国白蛾不同发育阶段相对表达水平注:不同小写字母表现差异显著(P < 0.05,单因素方差分析,LSD)。A~G,HcCP1、HcCP19、HcPCP36a、HcLCPA2B、HcPCP、HcL/PRCP66、HcLCP30。图 4同。Fig. 3 Relative expression levels of HcCPs genes in Hyphantria cunea at different deveopmental stagesNote: Different lowercase letters showed significant difference (P < 0.05, one-way ANOVA, LSD). A~G: HcCP1, HcCP19, HcPCP36a, HcLCPA2B, HcPCP, HcL/PRCP66, HcLCP30. Same to Fig. 4.下载:
全尺寸图片
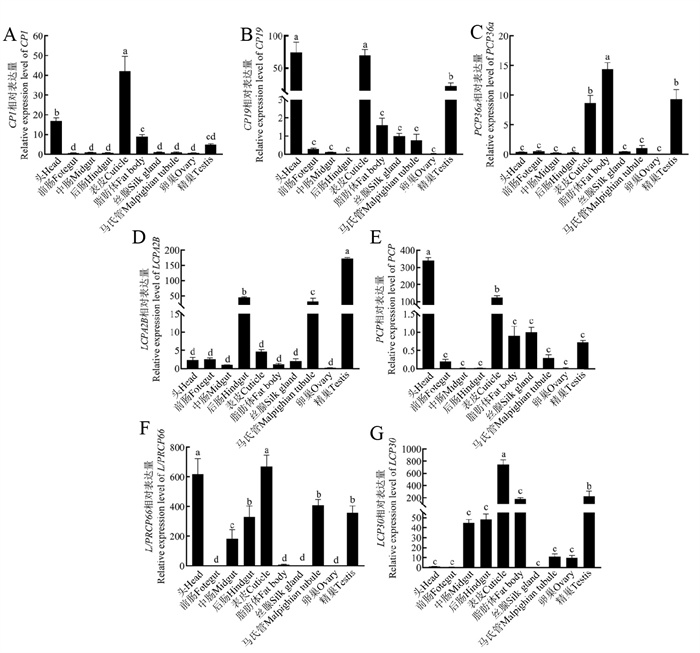 图 4 HcCPs基因在美国白蛾不同组织的相对表达水平Fig. 4 Relative expression levels of HcCPs genes in Hyphantria cunea at different tissues下载:
全尺寸图片
HcCP1、HcL/PRCP66和HcLCP30在美国白蛾表皮表达量达到峰值,分别为对照的42.00倍、671.32倍和746.22倍(图 4-A、F、G);HcCP19和HcPCP主要在头部表达,表皮中次之,而在其他组织中表达量较低(图 4-B、E);HcLCPA2B在精巢中表达量最高,为对照的172.52倍(图 4-D)。HcCP1在前肠表达量最低,仅为对照的59.24%(图 4-A);HcCP19、HcPCP36a、HcLCPA2B、HcPCP和HcL/PRCP66在卵巢中的表达水平最低,分别为对照的2.80%、1.37%、26.71%、1.54%和61.16%(图 4-B、C、D、E、F);HcLCP30在丝腺中表达量最低,仅为对照的4.25%(图 4-G)。
2.4 HcNPV感染对美国白蛾HcCPs基因表达的影响
利用RT-qPCR检测感染不同浓度HcNPV后美国白蛾幼虫体内的HcCPs转录水平。结果显示,2×103 PIBs/mL HcNPV感染后,除HcLCPA2B无显著变化外,其余6个表皮蛋白基因的表达量在24 h均显著升高,分别上调为对照组的8.38、2.59、554.43、11.09、194.22和3.54倍。感染HcNPV后48 h,HcCP1和HcLCPA2B的表达量下降,为对照的18.45%和5.56%;而HcPCP36a、HcPCP、HcL/PRCP66和HcLCP30分别上调为对照的7.81倍、152.16倍、512.07倍和88.82倍。HcCPs的表达水平在120 h显著高于对照组,分别上调为对照的91.14、82.71、4 994.20、38.94、61.35、5.02和84.44倍(图 5)。
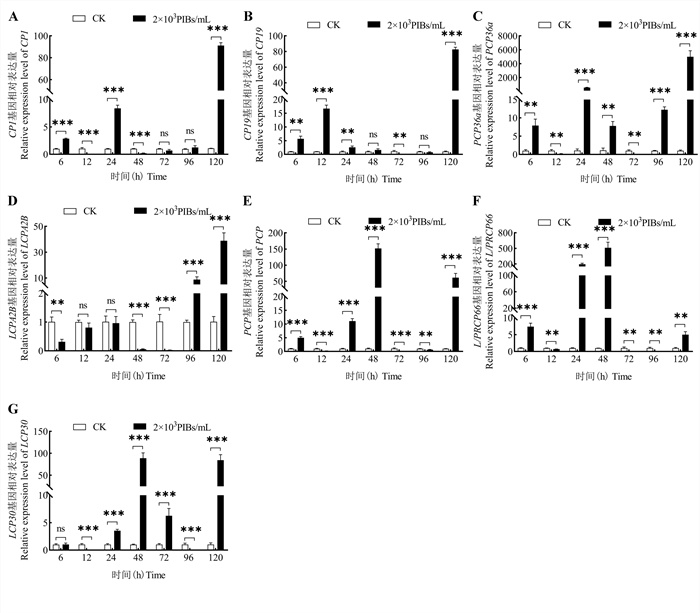 图 5 2×10³ PIBs/mL HcNPV胁迫下美国白蛾HcCPs基因的表达水平注:***、**和*分别表示0.001、0.01和0.05水平下处理组和对照组间差异显著性;ns表示处理组与对照组无显著差异。A~G,HcCP1、HcCP19、HcPCP36a、HcLCPA2B、HcPCP、HcL/PRCP66、HcLCP30。图 6同。Fig. 5 Expression levels of HcCPs genes in Hyphantria cunea under 2×10³ PIBs/mL HcNPV doses stressesNote: ***, ** and * indicated P-value at the level of 0.001, 0.01 and 0.05, respectively. ns indicates not significant. A~G: HcCP1, HcCP19, HcPCP36a, HcLCPA2B, HcPCP, HcL/PRCP66, HcLCP30. Same to Fig. 6.下载:
全尺寸图片
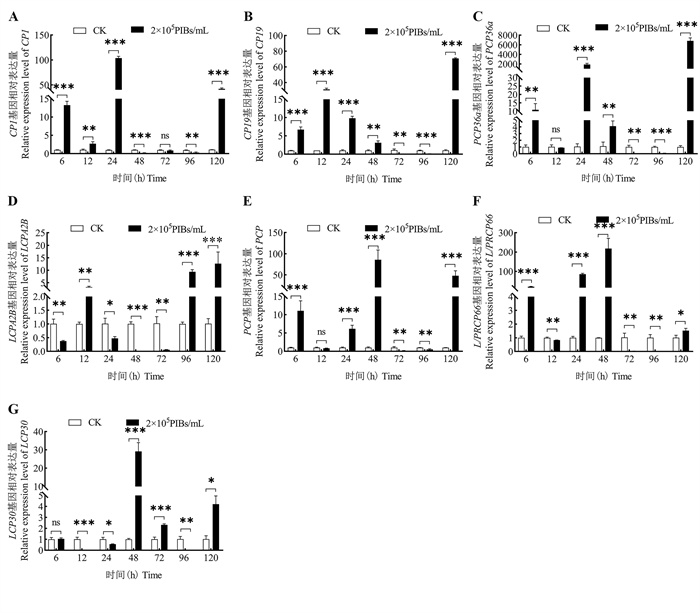 图 6 2×10⁵ PIBs/mL HcNPV胁迫下美国白蛾HcCPs基因的表达水平Fig. 6 Expression levels of HcCPs genes in Hyphantria cunea under 2×10⁵ PIBs/mL HcNPV doses stresses下载:
全尺寸图片
与对照组相比,在感染2×10⁵ PIBs/mL HcNPV后24 h,HcLCPA2B和HcLCP30的表达量显著下降,为对照组的47.44%和56.04%,而HcCP1、HcCP19、HcPCP36a、HcPCP和HcL/PRCP66分别上调为对照的103.77、9.83、1 893.32、6.15和85.38倍。感染后48 h,HcCP1和HcLCPA2B表达量显著低于对照组,其它5个HcCP基因表达水平均显著升高,分别上调了对照的3.12、4.11、15.32、218.66和29.16倍。与2×10³ PIBs/mL HcNPV感染后相似的是,与对照组相比,美国白蛾幼虫感染2×10⁵ PIBs/mL HcNPV后,HcCPs的表达量在120 h显著升高,分别上调为对照组的42.15、70.79、6824.98、12.66、48.06、1.52和4.21倍(图 6)。这些结果表明表皮蛋白基因HcCPs响应HcNPV的感染。
3. 结论与讨论
表皮主要由表皮蛋白和几丁质组成,表皮蛋白是结构蛋白,起填充表皮间隙和进一步加固表皮的作用(许雯等,2014),在昆虫生长发育、抵御外来入侵等方面均起着至关重要的作用(Andersen et al,1995)。NPV作为一种高度专一性的昆虫病毒,广泛应用于害虫防治(Pedrini et al.,2004;Kumar et al.,2015)。研究发现,昆虫感染NPV后,体内组织液化,体壁变得脆弱(Hawtin et al.,1995;Hawtin et al.,1997),NPV可能直接影响或破坏了表皮蛋白的结构和功能,导致昆虫体壁的完整性受损。
本研究从感染HcNPV的美国白蛾幼虫转录组中筛选得到7个表皮蛋白HcCPs基因。除HcLCPA2B和HcL/PRCP66外,均无跨膜结构域;除HcCP1其他6个基因均含有信号肽序列。HcCPs三级结构包含α螺旋、β折叠和无规则卷曲结构,这种连接方式增加了HcCPs蛋白的稳固性(Jeff and Hideo,2003)。系统进化树分析表明,HcCPs蛋白与庆网蛱蝶、烟草天蛾、棉铃虫、斜纹夜蛾、粉纹夜蛾和谷实夜蛾等鳞翅目昆虫的蛋白序列相似性较高,说明CP在不同鳞翅目昆虫中是非常保守的。在不同昆虫物种中CP的数量和特征有较大的差异(Locke,2001),在苹果蠹蛾Cydia pomonella基因组中共注释了182个表皮蛋白基因(Li et al.,2024),水稻螟虫Chilo suppressalis基因组中鉴定了211个预测的CP基因(Zheng et al.,2023)。昆虫CP在不同发育阶段和不同组织的表达也存在差异(Missios et al.,2000;Okamoto et al.,2008;Dittmer et al.,2012),如中红侧沟茧蜂Microplitis mediator的CP在卵和蛹两个角质层形成和发展的关键阶段表达量最高(Volovych et al.,2019);淡色库蚊Culex pipiens pallens中CpCPR117基因表达随着龄期的增长而逐渐增加,其在蛹期的表达水平最高(Wang et al.,2021)。本研究发现,7个HcCP基因在美国白蛾各个龄期均有表达,在幼虫期表达较高,在蛹期和成虫期表达量相对较低,这可能是由于幼虫期、蛹期为其表皮的形成和发育期,HcCPs参与了美国白蛾表皮形成。棉铃虫表皮蛋白基因HaCPFL67在雄成虫的表达量显著高于雌成虫(王晓冰等,2018),与本研究的研究结果相似。HcCPs在幼虫每个组织中均有表达,且在表皮中表达量较高,棉铃虫CP22和CP14基因均在幼虫的表皮中表达水平高(张万娜等,2021),绿盲蝽Apolygus lucorum表皮蛋白基因AlCP17在表皮中的表达量显著高于其它组织(谭永安等,2023),说明CP参与了昆虫蜕皮发育的变态行为,进而影响抵抗逆境等能力。柞蚕Antheraea pernyi表皮蛋白基因ApCP12在精巢高表达(马月月等,2018),正如本研究中HcLCPA2B在精巢中表达量最高,推测其在成虫生殖系统的发育中发挥一定的作用。
表皮蛋白在病毒感染过程中发挥着重要作用。感染HaIV病毒(Helicoverpa armigera iflavirus)的棉铃虫HaCP基因表达下降,幼虫死亡率显著增加(Yuan et al.,2020);CSBV(Chinese sacbrood virus)感染后东方蜜蜂Apis cerana表皮相关基因larval cuticle protein A1A、larval cuticle protein A2B、flexible cuticle protein 12-like和larval cuticle protein A3A显著上调(Deng et al.,2020)。在本研究中,发现感染HcNPV的美国白蛾幼虫体内表皮蛋白基因HcCPs在部分时间的表达量显著升高。这一结果表明,美国白蛾表皮蛋白基因HcCPs可能参与了其对病毒感染的免疫防御反应,在不同浓度HcNPV胁迫条件下,HcCPs基因表达呈现相似的动态变化模式:当病毒浓度为2×10³ PIBs/mL和2×105 PIBs/mL时,该基因的mRNA表达量均表现出先上升后下降、继而再次升高的波动性变化特征。这种动态的表达特征可能反映了美国白蛾幼虫表皮组织在不同感染阶段对病毒胁迫的差异化响应机制,初期上调可能为构建物理屏障,而后期再次升高则可能与组织修复过程相关。这些结果表明表皮蛋白基因HcCPs在美国白蛾HcNPV应激的免疫反应中具有重要作用。然而,HcCPs响应HcNPV胁迫的分子机制需要进一步研究验证。
附录:附图 1 CPs氨基酸序列多重比对结果
详细数据见网络版增强出版材料(http://hjkcxb.alljournals.net)
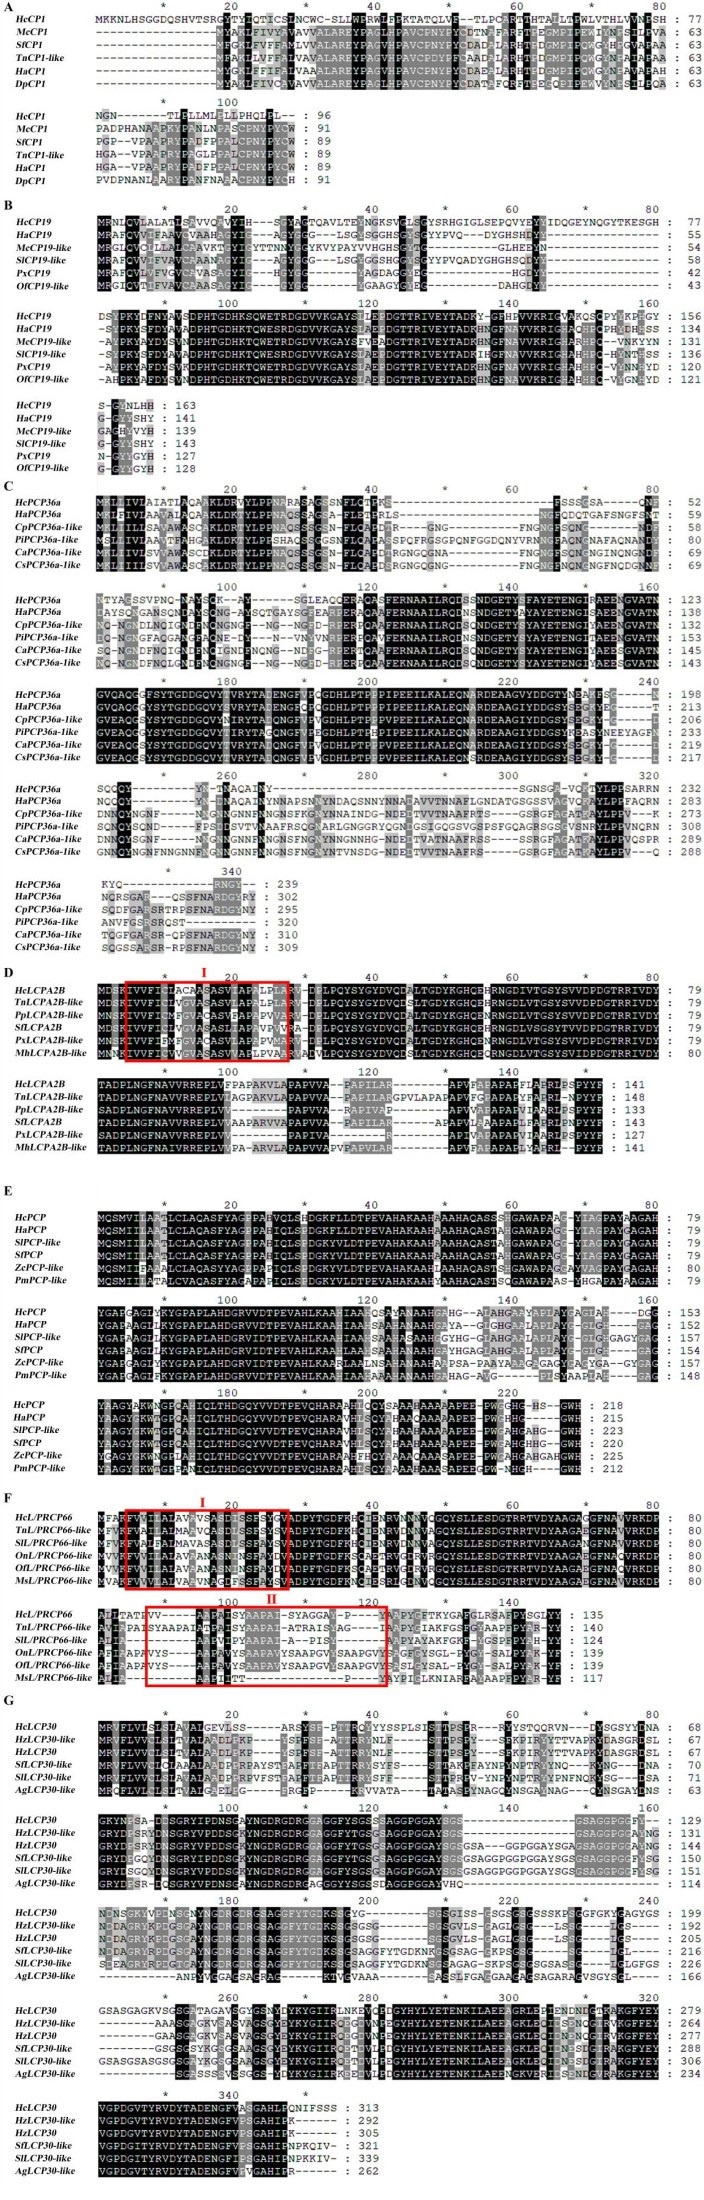 附图 1 CPs氨基酸序列多重比对结果注:红色方框内为跨膜结构域。A~G,HcCP1、HcCP19、HcPCP36a、HcLCPA2B、HcPCP、HcL/PRCP66、HcLCP30。Appendix Fig. 1 Multiple sequence alignment of CPs proteinsNote: The region within the red box corresponds to the transmembrane domains. A~G: HcCP1, HcCP19, HcPCP36a, HcLCPA2B, HcPCP, HcL/PRCP66, HcLCP30.下载:
全尺寸图片
-
图 1 HcCPs蛋白质三级结构预测
注:A~G,HcCP1、HcCP19、HcPCP36a、HcLCPA2B、HcPCP、HcL/PRCP66、HcLCP30。
Fig. 1 Protein tertiary structure prediction of HcCPs
下载:
全尺寸图片
图 2 美国白蛾与其他昆虫CP基因系统进化树
注:Hc,美国白蛾Hyphantria cunea Drury;Dp,君主斑蝶Danaus plexippus;Pp,玉带凤蝶Papilio polytes;Mc,庆网蛱蝶Melitaea cinxia;Tn,粉纹夜蛾Trichoplusia ni;Ha,棉铃虫Helicoverpa armigera;Sf,草地贪夜蛾Spodoptera frugiperda;Sl,斜纹夜蛾Spodoptera litura;Of,亚洲玉米螟Ostrinia furnacalis;Px,小菜蛾Plutella xylostella;Lg,大豆食心虫Leguminivora glycinivorella;Ms,烟草天蛾Manduca sexta;Cp,苹果蠹蛾Cydia pomonella;Ca,梨小食心虫Cydia amplana;Pn,暗脉菜粉蝶Pieris napi;Cc,红点豆粉蝶Colias croceus;Pi,印度谷螟Plodia interpunctella;Ba,丛林斜眼褐蝶Bicyclus anynana;Mh,环纹蝶Maniola hyperantus;Pa,斑点木蝶Pararge aegeria;Pm,金凤蝶Papilio machaon;Zc,菊黄花粉蝶Zerene cesonia;At,脐橙螟蛾Amyelois transitella;Ag,小蜡螟Achroia grisella;Hz,谷实夜蛾Helicoverpa zea;On,大丽花螟蛾Ostrinia nubilali。不同颜色代表不同CP基因;白色字体基因代表本研究鉴定的的7条CP基因。节点处的圆点为分支支持度。
Fig. 2 Phylogenetic tree of CP genes of Hyphantria cunea and other insects
Note: Different colors represent different CP genes; The white font genes represented the 7 CP genes dentified in this study. The dots at the node indicated branch support.
下载:
全尺寸图片
图 3 HcCPs基因在美国白蛾不同发育阶段相对表达水平
注:不同小写字母表现差异显著(P < 0.05,单因素方差分析,LSD)。A~G,HcCP1、HcCP19、HcPCP36a、HcLCPA2B、HcPCP、HcL/PRCP66、HcLCP30。图 4同。
Fig. 3 Relative expression levels of HcCPs genes in Hyphantria cunea at different deveopmental stages
Note: Different lowercase letters showed significant difference (P < 0.05, one-way ANOVA, LSD). A~G: HcCP1, HcCP19, HcPCP36a, HcLCPA2B, HcPCP, HcL/PRCP66, HcLCP30. Same to Fig. 4.
下载:
全尺寸图片
图 4 HcCPs基因在美国白蛾不同组织的相对表达水平
Fig. 4 Relative expression levels of HcCPs genes in Hyphantria cunea at different tissues
下载:
全尺寸图片
图 5 2×10³ PIBs/mL HcNPV胁迫下美国白蛾HcCPs基因的表达水平
注:***、**和*分别表示0.001、0.01和0.05水平下处理组和对照组间差异显著性;ns表示处理组与对照组无显著差异。A~G,HcCP1、HcCP19、HcPCP36a、HcLCPA2B、HcPCP、HcL/PRCP66、HcLCP30。图 6同。
Fig. 5 Expression levels of HcCPs genes in Hyphantria cunea under 2×10³ PIBs/mL HcNPV doses stresses
Note: ***, ** and * indicated P-value at the level of 0.001, 0.01 and 0.05, respectively. ns indicates not significant. A~G: HcCP1, HcCP19, HcPCP36a, HcLCPA2B, HcPCP, HcL/PRCP66, HcLCP30. Same to Fig. 6.
下载:
全尺寸图片
图 6 2×10⁵ PIBs/mL HcNPV胁迫下美国白蛾HcCPs基因的表达水平
Fig. 6 Expression levels of HcCPs genes in Hyphantria cunea under 2×10⁵ PIBs/mL HcNPV doses stresses
下载:
全尺寸图片
附图 1 CPs氨基酸序列多重比对结果
注:红色方框内为跨膜结构域。A~G,HcCP1、HcCP19、HcPCP36a、HcLCPA2B、HcPCP、HcL/PRCP66、HcLCP30。
Appendix Fig. 1 Multiple sequence alignment of CPs proteins
Note: The region within the red box corresponds to the transmembrane domains. A~G: HcCP1, HcCP19, HcPCP36a, HcLCPA2B, HcPCP, HcL/PRCP66, HcLCP30.
下载:
全尺寸图片
表 1 RT-qPCR引物序列信息
Table 1 RT-qPCR primer sequence information
基因Gene 正向引物序列(5'-3')Forward primer sequence 反向引物序列(5'-3')Reverse primer sequence RPL13 GTTAGCTACACAGCTCCGTGG GCAGCAGTTGGGGCTTTAGT EF-1α ATGAAATCTCTGTGACCGGGG GCGGTGGTATCGACAAACGT CP1 ATGAAGAAGAATTTACACTCCG GGTATTGCCATTGTGGGATG CP19 ATGCGTAACTTACAAGTACTTGC GCTTTCCTTAGTATAACCTTGGT PCP36a ATGAAATTGTTAATCGTCTTAGCGA GAGCCTCTAAACCTGAATATGC LCPA2B ATGGACTCCAAGATTGTAGTATTC TCAACGACTGAGTAGGATCC PCP ATGCAGTCTATGGTTATCCTAG GTAAGCGGGTCCTGCGATATAA L/PRCP66 ATGTTTGCGAAGTTCGTTGT AGCAGCTACAACAGGTGTAG LCP30 CGTGTTTTTGGTACTTAGTCTG GTCATCAGCACTGGGATTGT 表 2 HcCPs基因的理化性质
Table 2 Physical and chemical characteristics of HcCPs
基因名称
Gene name开放阅读框(bp)
ORF氨基酸数
Number of amino acids信号肽
Signal peptide分子量(kDa)
Molecular weight理论等电点
Theoretical pI不稳定系数
Instability indexCP1 291 96 否No 10.8 9.44 35.95 CP19 492 163 是Yes 18.2 6.28 24.41 PCP36a 720 239 是Yes 25.9 5.00 32.74 LCPA2B 426 141 是Yes 15.0 6.03 56.89 PCP 657 218 是Yes 22.1 6.52 31.28 L/PRCP66 408 135 是Yes 14.2 7.88 38.84 LCP30 942 313 是Yes 32.2 5.28 30.25 -
艾德洪, 于启文, 李玉璠, 等. 美国白蛾核型多角体病毒的应用研究[J]. 植物保护学报, 1984, 11(2): 127-132 Ai DH, Yu QW, Li YF, et al. Applied research on Hyphantria cunea nuclear polyhedrosis virus[J]. Journal of Plant Protection, 1984, 11(2): 127-132. Andersen SO, Hojrup P, Roepstorff P. Insect cuticular proteins[J]. Insect Biochemistry and Molecular Biology, 1995, 25(2): 153-176. doi: 10.1016/0965-1748(94)00052-J Asano T, Taoka M, Shinkawa T, et al. Identification of a cuticle protein with unique repeated motifs in the silkworm, Bombyx mori[J]. Insect Biochemistry and Molecular Biology, 2013, 43(4): 344-351. doi: 10.1016/j.ibmb.2013.01.001 Awolola TS, Oduola OA, Strode C, et al. Evidence of multiple pyrethroid resistance mechanisms in the malaria vector Anopheles gambiae sensu stricto from Nigeria[J]. Transactions of the Royal Society of Tropical Medicine and Hygiene, 2009, 103(11): 1139-1145. doi: 10.1016/j.trstmh.2008.08.021 崔伦. 美国白蛾无公害防治[J]. 吉林林业科技, 2003, 32(2): 38-43 Cui L. Hyphantria cunea pollution-free control[J]. Journal of Jilin Forestry Science and Technology, 2003, 32(2): 38-43. Deng YC, Zhao HX, Shen S, et al. Identification of immune response to sacbrood virus infection in Apis cerana under natural condition[J]. Frontiers in Genetics, 2020, 11: 587509. doi: 10.3389/fgene.2020.587509 Dittmer NT, Hiromasa Y, Tomich JM, et al. Proteomic and transcriptomic analyses of rigid and membranous cuticles and epidermis from the elytra and hindwings of the red flour beetle, Tribolium castaneum[J]. Journal of Proteome Research, 2012, 11(1): 269-278. doi: 10.1021/pr2009803 段彦丽, 曲良建, 王玉珠, 等. 美国白蛾核型多角体病毒传播途径及对寄主的持续作用[J]. 林业科学, 2009, 45(6): 83-86 Duan YL, Qu LJ, Wang YZ, et al. Sustainable effects for Hyphantria cunea nuclear polyhedrosis virus on the host insects and the diffusion approach of the virus[J]. Scientia Silvae Sinicae, 2009, 45(6): 83-86. Gan L, Zhou W, LI J, et al. A novel Cph-like gene involved in histogenesis and maintenance of midgut in Bombyx mori[J]. Pest Management Science, 2013, 69(12): 1298-1306. doi: 10.1002/ps.3501 Gao X, Tong XL, Gai TT, et al. Body shape and coloration of silkworm larvae are influenced by a novel Cuticular Protein[J]. Genetics, 2017, 207(3): 1053-1066. doi: 10.1534/genetics.117.300300 Hawtin RE, Arnold K, Ayres MD, et al. Identification and preliminary characterization of a chitinase gene in the Autographa californica nuclear polyhedrosis virus genome[J]. Virology, 1995, 208(2): 511-520. doi: 10.1006/viro.1995.1182 Hawtin RE, Zarkowska T, Arnold K, et al. Liquefaction of Autographa californica nucleopolyhedrovirus-infected insects is dependent on the integrity of virus-encoded chitinase and cathepsin genes[J]. Virology, 1997, 238(2): 243-253. doi: 10.1006/viro.1997.8816 He C, Liang JJ, Yang J, et al. Over-expression of CP9 and CP83 increases whitefly cell cuticle thickness leading to imidacloprid resistance[J]. International Journal of Biological Macromolecules, 2023, 233: 123647. doi: 10.1016/j.ijbiomac.2023.123647 Jeff ZYC, Hideo I. Universal model for α-helix and β-sheet structures in protein[J]. Physica A: Statistical Mechanics and its Applications, 2003, 321: 181-188. doi: 10.1016/S0378-4371(02)01789-2 Kumar CMS, Jacob TK, Devasahayam S, et al. Occurrence and characterization of a tetrahedral nucleopolyhedrovirus from Spilarctia obliqua (Walker)[J]. Journal of Invertebrate Pathology, 2015, 132: 135-141. doi: 10.1016/j.jip.2015.10.001 李红静, 王西南, 武海卫, 等. 应用美国白蛾核型多角体病毒防治美国白蛾效果评价[J]. 山东林业科技, 2013, 43(2): 80-81, 83 Li HJ, Wang XN, Wu HW, et al. Evaluation of the effect of Hyphantria Cunea nuclear polyhedrosis virus in the prevention and treatment of Hyphantria cunea[J]. Journal of Shandong Forestry Science and Technology, 2013, 43(2): 80-81, 83. Li ZY, Ouyang L, Wu Q, et al. Cuticular proteins in codling moth (Cydia pomonella) respond to insecticide and temperature stress[J]. Ecotoxicology and Environmental Safety, 2024, 270: 115852. doi: 10.1016/j.ecoenv.2023.115852 梁欣, 陈斌, 乔梁. 昆虫表皮蛋白基因研究进展[J]. 昆虫学报, 2014, 57(9): 1084-1093 Liang X, Chen B, Qiao L. Research progress in insect cuticular protein genes[J]. Acta Entomologica Sinica, 2014, 57(9): 1084-1093. 刘清明, 苑园园, 林健荣, 等. 昆虫表皮蛋白及其基因表达调控机理的研究进展[J]. 应用昆虫学报, 2010, 47(2): 247-255 Liu QM, Yuan YY, Lin JR, et al. Advance of researches on insect cuticular proteins and the regulation mechanism of their gene expression[J]. Chinese Bulletin of Entomology, 2010, 47(2): 247-255. 刘晓健, 刘卫敏, 赵小明, 等. 昆虫表皮发育研究进展及展望[J]. 应用昆虫学报, 2019, 56(4): 625-638 Liu XJ, Liu WM, Zhao XM, et al. Progress in the study of insect cuticle development and prospects for future research[J]. Chinese Bulletin of Entomology, 2019, 56(4): 625-638. Locke M. The Wigglesworth lecture: Insects for studying fundamental problemsin biology[J]. Journal of Insect Physiology, 2001, 47(4/5): 495-507. 罗立平, 王小艺, 杨忠岐, 等. 美国白蛾防控技术研究进展[J]. 环境昆虫学报, 2018, 40(4): 721-735 doi: 10.3969/j.issn.1674-0858.2018.04.1 Luo LP, Wang XY, Yang ZQ, et al. Research progress in the management of fall webworm, Hyphantria cunea (Drury) (Lepidoptera: Arctiidae)[J]. Journal of Environmental Entomology, 2018, 40(4): 721-735. doi: 10.3969/j.issn.1674-0858.2018.04.1 马月月, 刘微, 王勇, 等. 柞蚕RR-1亚族表皮蛋白基因ApCP12与ApCP193的表达特征与功能分析[J]. 昆虫学报, 2018, 61(2): 188-199 Ma YY, Liu W, Wang Y, et al. Expression profiling and functional analysis of RR-1 cuticular protein genes ApCP12 and ApCP193 in Antheraea pernyi (Lepidoptera: Saturniidae)[J]. Acta Entomologica Sinica, 2018, 61(2): 188-199. Missios S, Davidson HC, Linder D, et al. Characterization of cuticular proteins in the red flour beetle, Tribolium castaneum[J]. Insect Biochemistry and Molecular Biology, 2000, 30: 47-56. doi: 10.1016/S0965-1748(99)00096-X Moussian B. Recent advances in understanding mechanisms of insect cuticle differentiation[J]. Insect Biochemistry and Molecular Biology, 2010, 40(5): 367-375. Nevile A. Biology of the Arthropod Cuticle [M]. New York: Springer-Verlag, Zoophysiology and Ecology, 1975: 166-260. Okamoto S, Futahashi R, Kojima T, et al. Catalogue of epidermal genes: genes expressed in the epidermis during larval molt of the silkworm Bombyx mori[J]. BMC Genomics, 2008, 9: 396-396. doi: 10.1186/1471-2164-9-396 Pedrini MR, Wolff JL, Reid SE. Fast accumulation of few polyhedra mutants during passage of a Spodoptera frugiperda multicapsid nucleopolyhedrovirus (Baculoviridae) in Sf9 cell cultures[J]. Annals of Applied Biology, 2004, 145: 107-112. doi: 10.1111/j.1744-7348.2004.tb00365.x Silva GA, Picanço MC, Bacci L, et al. Control failure likelihood and spatial dependence of insecticide resistance in the tomato pinworm, Tuta absoluta[J]. Pest Management Science, 2011, 67(8): 913-920. doi: 10.1002/ps.2131 Snyder MP, Kimbrell D, Hunkapiller M, et al. A transposable element that splits the promoter region inactivates a Drosophila cuticle protein gene[J]. Proceedings of the National Academy of Sciences of the United States of America, 1982, 79(23): 7430-7434. Sun LL, Liu P, Sun SH, et al. Transcriptomic analysis of interactions between Hyphantria cunea larvae and nucleopolyhedrovirus[J]. Pest Management Science, 2019, 75(4): 1024-1033. doi: 10.1002/ps.5212 孙守慧, 南俊科, 杨丽元, 等. 美国白蛾天敌研究进展[J]. 环境昆虫学报, 2021, 43(6): 1331-1347 doi: 10.3969/j.issn.1674-0858.2021.06.01 Sun SH, Nan JK, Yang LY, et al. Research progress on natural enemies of the Hyphantria cunea (Drury)[J]. Journal of Environmental Entomology, 2021, 43(6): 1331-1347. doi: 10.3969/j.issn.1674-0858.2021.06.01 谭永安, 张杰钰, 姜义平, 等. 绿盲蝽表皮蛋白基因AlCP17的克隆、多克隆抗体制备及表达谱分析[J]. 昆虫学报, 2023, 66(1): 37-44 Tan YA, Zhang JY, Jiang YP, et al. Cloning, polyclonal antibody preparation and expression profiling of cuticular protein gene AlCP17 from Apolygus lucorum (Hemiptera: Miridae)[J]. Acta Entomologica Sinica, 2023, 66(1): 37-44. Vincent JU, Wegst UG. Design and mechanical properties of insect cuticle[J]. Arthropod Structure and Development, 2004, 33(3): 187-179. doi: 10.1016/j.asd.2004.05.006 Volovych O, Lin Z, Du J, et al. Identification and temporal expression profiles of cuticular proteins in the endoparasitoid wasp, Microplitis mediator[J]. Insect Science, 2019, 27(5): 998-1018. 王晓冰, 邓登辉, 张坤, 等. 棉铃虫表皮蛋白基因的克隆、序列及表达分析[J]. 中国生物防治学报, 2018, 34(4): 527-532 Wang XB, Deng DH, Zhang K, et al. Cloning, sequence and expression analysis of cuticle protein gene of Helicoverpa armigera[J]. Chinese Journal of Biological Control, 2018, 34(4): 527-532. Wang Y, Liu H, Guo X, et al. Molecular cloning and expression analysis of cuticular protein gene CpCPR117 in Culex pipiens pallens[J]. Chinese Journal of Vector Biology and Control, 2021, 32(4): 436-440. 吴立华, 靳亮, 王金昌, 等. 美国白蛾核型多角体病毒的研究进展[J]. 江西科学, 2014, 32(2): 133-138 Wu LH, Jin L, Wang JC, et al. Progresses of Hyphantria cunea nuclear polyhedrosis virus[J]. Jiangxi Science, 2014, 32(2): 133-138. 许雯, 罗淋淋, 吴华俊, 等. 松墨天牛表皮蛋白基因的克隆及表达分析[J]. 昆虫学报, 2014, 57(5): 515-521 Xu W, Luo LL, Wu HJ, et al. Cloning and expression profiling of a cuticular protein gene in Monochamus alternatus (Coleoptera: Cerambycidae)[J]. Acta Entomologica Sinica, 2014, 57(5): 515-521. 杨忠岐, 张永安. 重大外来入侵害虫: 美国白蛾生物防治技术研究[J]. 昆虫知识, 2007, 44(4): 465-471 Yang ZQ, Zhang YA. Researches on techniques for biocontrol of the fall webworm, Hyphantria cunea, a severe invasive insect pest to China[J]. Chinese Bulletin of Entomology, 2007, 44(4): 465-471. 于性跃, 任立新, 艾德洪, 等. 美国白蛾核型多角体病毒对几种脊椎动物的安全性试验[J]. 辽宁农业科学, 1983, 4: 49-51 Yu XY, Ren LX, Ai DH, et al. Safety test of Hyphantria cunea nuclear polyhedrosis virus in several vertebrates[J]. Liaoning Agricultural Sciences, 1983, 4: 49-51. Yuan H, Xu PJ, Xiao YT, et al. Infection of cotton bollworm by Helicoverpa armigera iflavirus decreases larval fitness[J]. Journal of Invertebrate Pathology, 2020, 173: 107384. doi: 10.1016/j.jip.2020.107384 张万娜, 刘香亚, 赖乾, 等. 棉铃虫表皮蛋白基因CP192和CP14的表达特征及其对甲氧虫酰肼的响应[J]. 植物保护学报, 2021, 48(5): 1043-1053 Zhang WN, Liu XY, Lai Q, et al. Expression analysis of cuticular protein genes CP192 and CP14 in cotton bollworm Helicoverpa armigera and their response to the sublethal dose of methoxyfenozide[J]. Journal of Plant Protection, 2021, 48(5): 1043-1053. Zhao YC, Zhang L, Zou CS, et al. Chlorbenzuron downregulated HcLCP-17 expression by depressing two 20E-responsive transcription factors Br-C and βFTZ-F1 in Hyphantria cunea (Lepidoptera: Erebidae) larvae[J]. Pest Management Science, 2024, 80(12): 6450-6464. doi: 10.1002/ps.8377 Zheng Y, Liu CP, Wang S, et al. Genome-wide analysis of cuticle protein family genes in rice stem borer Chilo suppressalis: Insights into their role in environmental adaptation and insecticidal stress response[J]. International Journal of Biological Macromolecules, 2023, 242: 124989. doi: 10.1016/j.ijbiomac.2023.124989
