
Transcriptome analysis of fall armyworm Spodoptera frugiperda feeding on maize and sorghum
-
摘要:目的
为探究草地贪夜蛾Spodoptera frugiperda在转录水平对不同寄主植物的适应机制。
方法本研究对取食玉米和高粱的草地贪夜蛾幼虫进行转录组测序、功能注释与分类、差异表达基因的分析与验证。
结果转录组结果显示,与取食玉米的草地贪夜蛾幼虫相比,取食高粱的草地贪夜蛾幼虫发现1 454个差异表达基因,其中上调表达基因860个,下调表达基因594个。GO功能和KEGG通路富集分析发现取食高粱的幼虫差异表达基因在碳水化合物代谢和毒物代谢等过程均显著富集,其中鉴定到39个差异表达解毒酶基因,包括9个UDP-葡萄糖醛酸转移酶、8个谷胱甘肽硫转移酶、3个羧基/胆碱酯酶、16个细胞色素P450和3个ATP结合盒转运蛋白基因。qRT-PCR验证进一步证实取食高粱极显著诱导了草地贪夜蛾幼虫UGT2-4、UGT33B13、GSTS1、CYP4G74和CYP4G15-2的表达。
结论总之,本研究通过组学分析与分子验证表明这些上调的解毒酶基因在草地贪夜蛾幼虫对寄主高粱的适应中发挥了重要作用。
Abstract:AimTo investigate the adaptation mechanism of the fall armyworm Spodoptera frugiperda to different host plants at the transcriptional level.
MethodsThis study carried out transcriptome sequencing, functional annotation and classification, as well as the analysis and verification of differentially expressed genes (DEGs) in larvae feeding on maize and sorghum.
ResultsTranscriptomic analysis identified 1 454 DEGs in larvae feeding on sorghum relative to maize, including 860 upregulated genes and 594 downregulated genes. GO functional and KEGG pathway enrichment analyses showed that these DEGs were simultaneously enriched in processes related to carbohydrate and toxin metabolism, and so on. Among the DEGs, 39 DEGs were identified as detoxification enzyme genes, including 9 UDP-glucuronosyltransferase, 8 glutathione S-transferase, 3 carboxyl/cholinesterase, 16 cytochrome P450, and 3 ATP-binding cassette transporter genes. qRT-PCR validation further confirmed that sorghum feeding dramatically induced the expression of detoxification enzyme genes UGT2-4, UGT33B13, GSTS1, CYP4G74, and CYP4G15-2 in S. frugiperda larvae.
ConclusionCollectively, this study, supported by both transcriptomic analysis and molecular validation, suggests that these upregulated detoxification enzyme genes play an essential role in the adaptation of fall armyworm larvae to sorghum as a host.
-
Keywords:
- Spodoptera frugiperda /
- sorghum /
- transcriptome sequencing /
- differentially expressed gene /
- qRT-PCR
-
草地贪夜蛾Spodoptera frugiperda是鳞翅目夜蛾科灰翅夜蛾属昆虫,原产美洲热带与亚热带地区,具有迁飞习性,自2019年1月入侵我国以来,已经在我国多个省市发现(姜玉英等,2019;Sun et al.,2021;刘博等,2022),对我国的粮食安全构成重大威胁,被列入我国一类农作物病虫害名录。该虫是一种多食性昆虫,可以取食包括玉米、水稻、小麦等主要粮食作物在内的76科353种寄主植物(Montezano et al.,2018)。根据取食的偏好性,可以将其分为玉米型和水稻型2种,玉米型主要取食玉米和高粱,水稻型主要取食水稻、草坪和牧草等(Pashley,1986;Nagoshi and Meagher,2008),入侵我国的主要以玉米型为主(Jiang et al.,2022)。因此,探究草地贪夜蛾的寄主偏好性及其对寄主的潜在适应分子机制,对建立绿色安全高效的预测防控体系具有重要意义。
植食性昆虫面对不同寄主时会表现出明显的寄主偏好性,其发育、存活和繁殖会因取食植物种类不同存在显著差异(Schoonhoven et al.,2005)。尽管草地贪夜蛾在玉米、小麦、高粱和水稻等作物上均能完成生活史,但对不同寄主的适合度仍存在差异。例如,草地贪夜蛾取食小麦和水稻后,幼虫存活率、化蛹率、羽化率和世代存活率等指标显著低于玉米(巴吐西等,2020;邱良妙等,2020;Guo et al.,2022)。同样,取食高粱也会降低草地贪夜蛾幼虫存活率、食物利用效率、发育总历期和种群的净增殖率(吕亮等,2022)。此外,草地贪夜蛾还可以取食萝卜、西兰花、菜心、芥菜和大豆等作物,尽管会造成幼虫发育历期延长,存活率和成虫产卵前期等指标降低,但仍能完成生活史(刘伟等,2021;雷春媚等,2023)。另外,草地贪夜蛾对一些杂草,比如马唐有较高的取食偏好性(苏湘宁等,2022)。这些结果表明,草地贪夜蛾寄主范围广泛,其暴发时存在从主要寄主-玉米转移到其他比玉米适应性低的寄主上为害的风险。
高粱是世界五大禾谷类作物之一,也是我国干旱半干旱地区重要的杂粮作物(孟彦等,2020)。高粱和玉米、水稻同属于禾本科粮食作物,自然条件下的种植区域和生育期存在重叠。自从草地贪夜蛾入侵我国以来,已经报道草地贪夜蛾可以转主为害高粱。例如,2019年发现草地贪夜蛾在云贵等地区(姜玉英等,2019)、河南省新乡市(刘彬等,2020),2023年在江西省九江市为害高粱(洪霖等,2023)。由此可见,在种群竞争大和寄主玉米来源不足时,草地贪夜蛾可以从玉米转移到高粱上为害。目前已有研究发现草地贪夜蛾取食高粱可以造成其寄主适应性降低,对生长发育和种群繁殖产生不利影响(吕亮等,2022);反之,草地贪夜蛾取食会迅速诱导高粱防御物质来抵抗昆虫的取食(Grover et al.,2022)。但是,草地贪夜蛾是如何快速适应高粱,利用自身复杂的代谢解毒酶系统来适应寄主高粱还不清楚。为此,本研究基于转录组分析研究了草地贪夜蛾幼虫对玉米和高粱的寄主适应转录调控基础,为草地贪夜蛾在我国的扩散适应风险分析,完善其防控体系提供有力依据。
1. 材料与方法
1.1 供试昆虫和植物
草地贪夜蛾幼虫初始来源于云南省德宏傣族景颇族自治州玉米田。幼虫用人工饲料单头饲养在养虫管中,人工饲料购自河南省济源白云实业有限公司。草地贪夜蛾饲养条件为:光周期16 L∶8 D,温度(25 ± 1)℃,相对湿度60%~70%。待化蛹后从养虫管中取出,区分雌雄蛹。成虫饲喂10%蜂蜜水。
甜玉米品种中农甜488种子购自北京华耐农业发展有限公司,高粱品种红缨子种子购自晋中市太谷区绿宝种业有限公司。玉米和高粱盆栽种植在山西农业大学生物安全与生物防治研究基地温室。每个花盆种植10颗种子,待生长到2~3周时,供后续实验使用。
1.2 主要试剂和仪器
试剂:cDNA文库构建试剂盒,武汉埃博泰克公司;FastKing cDNA第一链合成试剂盒(去基因组),天根生化科技(北京)有限公司;细胞/组织总RNA提取试剂盒(FastPure Cell/Tissue Total RNA Isolation Kit)和荧光定量PCR专用预混液(ChamQ Universal SYBR qPCR Master Mix),南京诺唯赞生物科技股份有限公司。
仪器:Illumina Novaseq 6000测序仪,美国因美纳公司;ABI 7500荧光定量PCR仪,美国应用生物系统公司;Agilent 5400片段分析仪,安捷伦科技有限公司。
1.3 样品准备和转录组测序
每盆玉米和高粱植株接种10头大小一致、生长健康的草地贪夜蛾3龄幼虫,黑暗条件下取食24 h。随后,以取食玉米的草地贪夜蛾幼虫作为对照,取食高粱的幼虫作为处理,取样后液氮冷冻后-80℃保存,用于后续转录组测序。对照和处理样品分别设置3个生物学重复,每个重复由5~6头幼虫组成。
转录组测序委托北京诺禾致源生物科技有限公司完成。草地贪夜蛾幼虫总RNA提取使用细胞/组织总RNA提取试剂盒完成。RNA降解和污染使用1%琼脂糖凝胶进行检测,RNA纯度使用Nano Photometer分光光度计检测,RNA完整性使用Agilent 5400片段分析仪检测。文库构建使用cDNA文库构建试剂盒,操作按说明步骤完成。文库构建完成后,先使用Qubit 2.0 Fluorometer进行初步定量,稀释文库至1.5 ng/μL,随后使用Agilent 2100生物分析仪对文库的插入大小进行检测,插入大小符合预期后,对文库有效浓度进行定量(文库有效浓度高于1.5 nM),以保证文库质量。
构建成功的文库使用Illumina Novaseq 6000平台测序,采用150 bp测序策略完成测序。测序获得的原始数据(Raw reads)中包含少量带有测序接头或测序质量较低的reads,需要对原始数据进行过滤,包括:去除带接头的reads;去除含N(N表示无法确定碱基信息)的reads;去除低质量reads(Qphred≤5的碱基数占整个read长度的50%以上的reads),获得高质量序列(Clean reads)。
1.4 基因注释
转录组测序使用有参基因组进行比对、注释。首先从NCBI下载获得参考基因组和基因模型注释文件(BioProject登录号:PRJNA590312)。使用HISAT2 v2.0.5构建参考基因组的索引,随后将clean reads与参考基因组进行快速精确比对(Xiao et al.,2020),获取reads在参考基因组上的定位信息(Mortazavi et al.,2008)。其次,采用软件StringTie v1.3.3b进行新转录本组装(Pertea et al.,2015),并利用Pfam、SUPERFAMILY蛋白质家族数据库、基因本体(Gene ontology,GO)数据库、京都基因与基因组百科全书(Kyoto encyclopedia of genes and genomes,KEGG)数据库等进行注释。根据基因比对在参考基因组上的位置信息,使用软件featureCounts v1.5.0-p3计算每个基因的每千个碱基的转录每百万映射读取的fragments(Fragment per kilobase of transcript per million mapped fragments,FPKM)值,评价每个基因的相对表达丰度。使用R v 3.5.0软件绘制韦恩图和火山图。采用clusterProfiler v3.8.1软件对差异基因集进行GO功能富集分析和KEGG通路富集分析,以校正后的P值(P-adjusted,padj)<0.05作为显著性富集的阈值。
1.5 差异表达解毒酶基因分析
根据测序获得基因的read count值,取食玉米和高粱后的草地贪夜蛾幼虫差异表达解毒酶基因利用软件DESeq2 v1.20.0进行差异表达分析。使用Benjamini-Hochbery方法对原有假设检验获得P值进行校正,并采用校正后的P值作为差异表达基因(Differentially expressed genes,DEGs)筛选的指标之一。同时,计算取食高粱的幼虫基因表达水平与取食玉米幼虫的基因表达水平间的差异变化倍数(Fold change,FC)。差异表达基因筛选的阈值为FC≥2和校正后的P≤0.05(Anders and Huber,2010)。
1.6 荧光定量PCR
以取食玉米24 h的草地贪夜蛾3龄幼虫作为对照,取食高粱的幼虫作为处理。每个对照和处理分别由5~6头幼虫组成,进行3次生物学重复。草地贪夜蛾幼虫总RNA提取和cDNA合成分别使用细胞/组织总RNA提取试剂盒和FastKing cDNA第一链合成试剂盒(去基因组),操作步骤按试剂盒说明书方法。荧光定量PCR(Quantitative real-time PCR,qRT-PCR)采用ABI 7500荧光定量PCR仪完成,扩增反应总体系为20 µL,其中包括10 µL ChamQ Universal SYBR qPCR Master Mix、2 µL cDNA、0.8 µL引物(正反引物各0.4 µL,表 1)、RNase-free water补足至20 µL。qRT-PCR反应条件为预变性:95ºC 30 s;40个循环:95ºC 10 s,60ºC 30 s;溶解曲线:95ºC 15 s,60ºC 1 min,95ºC 30 s,60ºC 30 s。草地贪夜蛾核糖体蛋白L10基因(Ribosomal protein L10,RPL10,XM_035580073)作为内参基因(Han et al.,2021)。基因表达量使用2–ΔΔCt法进行计算(Livak and Schmittgen,2001),各组基因表达量变化使用t检验(Student's t test)分析完成。
表 1 本试验使用引物Table 1 Primers used in this study名称Name 正向引物Forward primer 反向引物Reverse primer UGT2 AGGAAGGACTTTTGATCTCG GTATGATAGCAGCGTGGAAG UGT2-2 CAGCTATTCTTTCCCATCCT TAATGCGAACCCTCTGTTTA UGT2-3 TGGAAGAGCTATGGACAAGA TATCGGACCTCACTGTATGG UGT2-4 TCATCCAAAACTGAAGCTGT TCTCTCAGCATTGAACGACT UGT33B13 GCTGTTTTTGAATGCTCATC GTCCGCAGGTAATTCTTTCT UGT33J2 ACACCAGCGAACTTAACAGA GCTTCCCTTTGATGATCTCT UGT40F3 CACCGATCATCACAGTTTTT CATCATGGAAAACACGAAGT UGT40F5 TTGGTAATCCAAACGTCAAC GTTGTATGAGGGGTTTAGGG UGT40Q2 TGACCATTGCAAATAGATCC ATCCAGCATACAAGTGATGG GSTD1 TTCGAACTGGTGAAAACAAC CTCAGTTTTGGCTTTGAATG GSTD2 CATTCAGGCAAGAGAATCTG AAATGTCAGCCAATGTCATC GSTE1 ATGCAACCATGAAGTACCTG TCCGAATACAGCTGGTAAAA GSTE2 TGGACCAGTGCATATTCTTC GTAGGCTTCGTCAATGTCTG GSTE14 TTCCAAAGAGGAAGGAAGAC TATATTCGAGAGTGGCCAGA GSTS1 TGGGGTGACTTTGTACTCTG CTCCTTTACTCCTGGCAGAT GSTS2 TCGGTTGGTTTGACTACATC TACAGCATCAGCGTAGGTCT GSTM1 TGCAGGCCTACATTCTGTAT TTGTCTTAGCATCCTCTGGA CCE1 ATCCATACGATGCAGTCAAC CGTAAATAGTGGCAACAAGG CarE1 TTTTATGGAGACCTGCTTGA ATTGACCTGGTCCTTGAAAT CCE2 TCAAGTGAACCCTGACAATC TAGATCCAAACCATCACTGG CYP340AX8 TACTGCGCTGTTCCAATTAT AACAGGGTTACTAGGCAAGG CYP4C1 TGCTGATGTGTCTGATGGTA TAAACGTGTTGACCTCATCC CYP4C3 TTGCAACCTGACGTACTCTT CAAAGTCAGCAATCTTGTCC CYP4D2 CGATGTTGGAATAAGGAACA GTCGTGACCCTCAAACATAA CYP4G15 ACTTTTGGACATCATTCACG GCCTTTGAAGACTGTGTCTG CYP4G15-2 CACCAGGATATCCAAGACAA AACATTCTGAGGGTTTCCAT CYP4G74 TCATGGTCTTACCAACAAGG GATTCGATCATCAAGTCCAA CYP49A1 GACTAGGTTTGCTGGAAGGT TTGTTCTCATCTCCGTGAAC CYP6B1 ACCAACATAGTGGTGGAGAG ATTAGGGCGAATCTTTTACC CYP6B2 GACGATTTGCTAATGACAGC CTCATCGACTCGTAAAATGC CYP6B6 ATAACGAAGTTGCTGTCCAA ATTCAACCGTATTCCACCTT CYP6B7 TAGCTGACGAGCTCTACTGG CAAAGAACAGGTTCTGCATC CYP6I1 GAGAAAGAAGACAGGGGAAA GCCAATGTTGTTGATGAAGT CYP6K1 AACGGTTTCTTCCTGAGAAC AGCAGGGTGGTAGAAGAGTC CYP9E2 TAGGGAAGAAGGCAGTCATA TCTCTACGAGCCTTTAGTGC CYP12A2 AGGGCACCCATGATAATACT GTGTGAGCATTGTGATCCTT ABCG4 GCAGTGAACAAAGGAAACTG GTGCAAGGTTCGTAGAGTTG ABCB7 GGACTGGCTTTTACTGGTCT TTCTGCAGCTCGTACTTCTC ABCG20 CGTCTTCGGAAGTACAAGTG TCTTGTTGCCGTAGATAGGA RPL10 TGGGTAAGAAGAAGGCTACG TGTTGATGCGGATGACAT 2. 结果与分析
2.1 草地贪夜蛾幼虫转录组数据质控
利用Illumina Novaseq 6000测序平台,取食玉米(对照组)和高粱(处理组)的草地贪夜蛾幼虫转录组共获得41.72 Gb原始数据,39.21 Gb质控数据。各样品质控数据平均达到6.54 Gb,Q20和Q30碱基百分比分别在98.18%和95.00%以上,平均GC含量47.92%(表 2),表明转录组数据质量较好,可以满足后续数据分析要求。
表 2 取食玉米和高粱的草地贪夜蛾幼虫转录组数据质控Table 2 Quality control of transcriptome data from Spodoptera frugiperda larvae feeding on maize and sorghum样品
Sample原始测序量(G)
Raw bases过滤后测序量(G)
Clean basesQ20值(%)
Q20Q30值(%)
Q30GC含量(%)
GCLZm_1 7.38 7.01 98.39 95.50 45.64 LZm_2 7.23 6.81 98.19 95.06 48.29 LZm_3 6.47 5.90 98.18 95.00 48.39 LSb_1 6.60 6.11 98.33 95.33 49.16 LSb_2 7.53 7.23 98.46 95.81 47.29 LSb_3 6.51 6.15 98.25 95.19 48.73 注:LZm,取食玉米植株的幼虫;LSb,取食高粱植株的幼虫。Note: LZm, Larvae fed with maize plants; LSb, Larvae fed with sorghum plants. 2.2 草地贪夜蛾幼虫转录组数据组装与注释
从取食玉米和高粱的草地贪夜蛾幼虫转录组数据中总共注释到11 193个unigene,其中,取食玉米幼虫特异表达基因714个,取食高粱幼虫特异表达基因954个,二者共有表达基因9 525个(图 1-A)。使用软件DESeq2 v1.20.0进行差异表达分析,总共筛选到差异表达基因1 454个,其中上调差异表达基因860个,下调差异表达基因594个(图 1-B)。
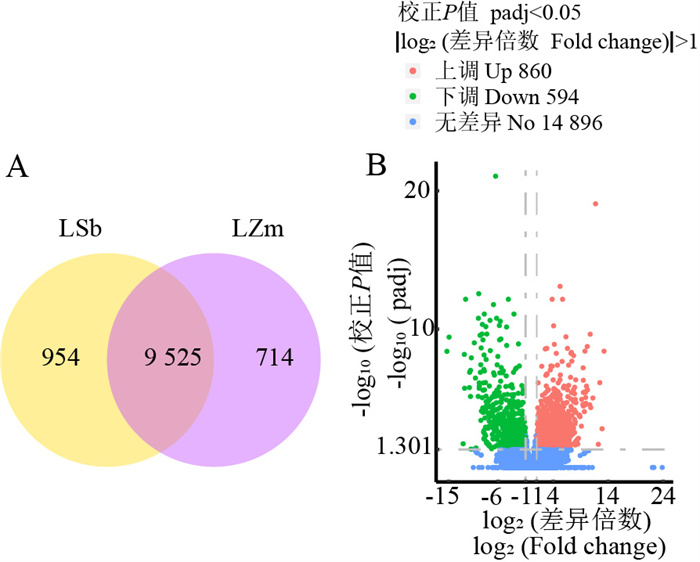 图 1 草地贪夜蛾幼虫取食玉米和高粱的差异表达基因分析注:A,韦恩图;B,热图。LZm,取食玉米植株的幼虫;LSb,取食高粱植株的幼虫。Fig. 1 Analysis of differentially expressed genes of Spodoptera frugiperda larvae feeding on maize and sorghumNote: A, Venn diagram; B, Volcano plot. LZm, Larvae fed with maize plants; LSb, Larvae fed with sorghum plants.
 下载:
全尺寸图片
2.3 差异表达基因GO功能富集分析
取食玉米和高粱幼虫转录组中,GO功能富集分析发现1 454个差异表达基因富集到505个功能条目下,其中78个功能条目(padj < 0.05)显著富集到生物过程、细胞组分和分子功能,选择前30个显著富集的功能条目绘制柱状图(不足30个,则绘制所有)。显著富集的功能条目中,涉及生物过程的条目数量最多,有48个;其次是分子功能,有29个;细胞组分的数量最少,仅有1个。从生物过程类别来看,与取食玉米的幼虫相比,取食高粱幼虫的差异表达基因富集到碳水化合物代谢过程的基因数量达到51个,其中42个上调表达基因和9个下调表达基因;其次是毒物代谢过程富集到12个上调表达基因和18个下调表达基因(图 2)。细胞组分类别中有26个差异表达基因富集到胞外区域,包括8个上调基因和18个下调基因,其他区域没有基因富集(图 2)。对分子功能类别而言,取食高粱转录组中共有94个基因富集到辅因子结合条目,其中69个基因上调表达,25个基因下调表达;其次是亚铁血红素结合和四吡咯结合条目都富集到49个差异表达基因,均包括35个上调表达基因和14个下调表达基因(图 2)。
 图 2 取食玉米和高粱的草地贪夜蛾幼虫差异表达基因GO功能富集Fig. 2 GO function enrichment of differentially expressed genes in Spodoptera frugiperda larvae feeding on maize and sorghum下载:
全尺寸图片
2.4 差异表达基因KEGG通路富集分析
KEGG通路富集发现,差异基因富集到105个KEGG功能条目中,其中35个功能条目(padj < 0.05)显著富集。选择富集程度排名前20的通路绘制散点图,结果发现有一半的通路富集到差异表达基因的数量超过20个,分别是碳代谢(34)、辅因子生物合成(31)、过氧化物酶体(29)、脂肪酸代谢(28)、毒物代谢-其他酶(28)、细胞色素P450对外源性药物的代谢(25)、毒物代谢-细胞色素(23)、氨基酸生物合成(23)、不饱和脂肪酸生物合成(22)、谷胱甘肽代谢(20)通路。这些显著富集的通路可能参与草地贪夜蛾在取食高粱时能量代谢、有毒物质代谢处理等过程(图 3)。
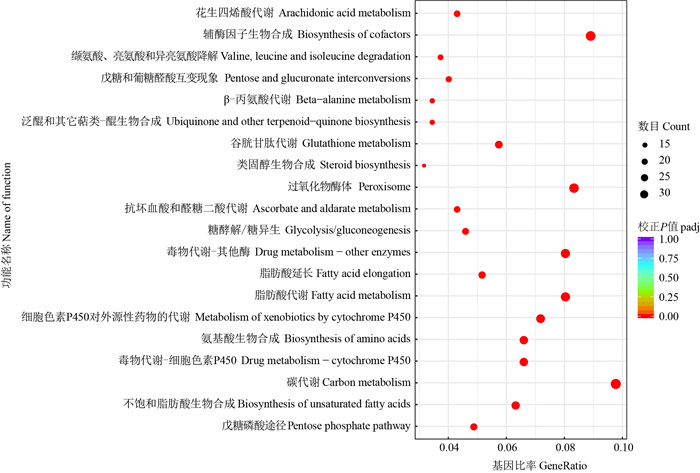 图 3 取食玉米和高粱的草地贪夜蛾幼虫差异表达基因KEGG通路富集Fig. 3 KEGG pathway enrichment of differentially expressed genes in Spodoptera frugiperda larvae feeding on maize and sorghum下载:
全尺寸图片
已有研究表明,高粱植株中含有种类丰富的次生化合物来防御草地贪夜蛾的取食(Grover et al.,2022)。在上述差异表达基因KEGG通路富集分析中,尤其是毒物代谢-其他酶、细胞色素P450对外源性药物的代谢、毒物代谢-细胞色素P450这3个通路涉及对毒性化合物的解毒代谢,其中毒物代谢-其他酶富集28个差异表达基因,包括26个上调基因和2个下调基因;细胞色素P450对外源性药物的代谢通路富集25个上调差异表达基因;毒物代谢-细胞色素P450代谢通路富集23个上调差异表达基因(图 3)。
2.5 差异表达解毒酶基因表达分析
植物利用次生防御物质作为防御植食性昆虫的主要屏障,反之,这些昆虫也进化出复杂的解毒酶系统来适应植物的防御反应(Li et al.,2007)。目前,植食性昆虫中主要的解毒酶家族包括尿苷二磷酸(UDP)-葡萄糖醛酸转移酶[Uridine diphosphate(UDP)-glucuronosyl-transferase,UGT]、谷胱甘肽硫转移酶(Glutathione S-transferase,GST)、羧基/胆碱酯酶(Carboxyl/cholinesterase,CCE)、细胞色素P450(Cytochrome P450,P450)和ATP结合盒转运蛋白(ATP binding cassette transporter,ABC)(Pearce et al.,2017)。从上述转录组差异表达基因中,总共筛选到39个解毒酶基因(表 3)。
表 3 取食玉米和高粱草地贪夜蛾幼虫差异表达解毒酶基因注释Table 3 Annotation of differentially expressed genes of detoxification enzymes in Spodoptera frugiperda larvae feeding on maize and sorghum名称
Name基因编号
Gene ID开放阅读框(aa)
Open reading frame相似性(%)
IdentityE值
E-value最佳比对结果
BLASTx best hitUDP-葡萄糖醛酸转移酶UDP-glucosyltransferase UGT2 118267688 544 99.82 0 XP_035437704.2 UDP-glucosyltransferase 2 [Spodoptera frugiperda] UGT2-2 118277899 524 99.62 0 XP_035452798.2 UDP-glucosyltransferase 2 [Spodoptera frugiperda] UGT2-3 118277900 523 98.09 0 XP_050556287.1 UDP-glucosyltransferase 2-like [Spodoptera frugiperda] UGT2-4 118279411 525 98.29 0 XP_035454996.2 UDP-glucosyltransferase 2 [Spodoptera frugiperda] UGT33B13 118279155 515 98.83 0 QGA73337.1 UDP-glucuronosyltransferase 33B13 [Spodoptera frugiperda] UGT33J2 118279189 518 97.30 0 XP_050554448.1 UDP-glycosyltransferase UGT5 isoform X5 [Spodoptera frugiperda] UGT40F3 118277904 522 99.43 0 XP_035452810.2 UDP-glycosyltransferase UGT5-like [Spodoptera frugiperda] UGT40F5 118277903 522 99.04 0 QGA73343.1 UDP-glucuronosyltransferase 40F5 [Spodoptera frugiperda] UGT40Q2 118277768 523 100.00 0 XP_035452567.1 UDP-glucosyltransferase 2 [Spodoptera frugiperda] 谷胱甘肽硫转移酶Glutathione S-transferase GSTD1 118269545 221 99.55 2.00E-158 XP_035440580.2 Glutathione S-transferase 1 [Spodoptera frugiperda] GSTD2 118277778 217 100.00 0 XP_035452574.1 Glutathione S-transferase 1 [Spodoptera frugiperda] GSTE1 118267113 222 98.65 4.00E-159 XP_035436804.2 Glutathione S-transferase 1-like [Spodoptera frugiperda] GSTE2 118266709 223 99.10 6.00E-160 XP_050559253.1 Glutathione S-transferase 1 [Spodoptera frugiperda] GSTE14 118282244 217 99.54 5.00E-159 QGA73323.1 Glutathione S-transferase GST epsilon14 [Spodoptera frugiperda] GSTS1 118270053 212 100.00 2.00E-154 UNG44362.1 Glutathione S-transferase [Spodoptera frugiperda] GSTS2 118272232 204 97.55 5.00E-142 XP_050549803.1 Glutathione S-transferase 2-like [Spodoptera frugiperda] GSTM1 118262355 151 98.01 5.00E-101 QGA73335.1 Microsomal glutathione S-transferase mGST1 transcript variant 1 [Spodoptera frugiperda] 羧基/胆碱酯酶Carboxyl/cholinesterase CCE1 118262879 554 98.74 0 XP_035430420.2 Cholinesterase 1 [Spodoptera frugiperda] CarE1 118276151 537 87.52 0 ABE01157.2 Carboxylesterase [Spodoptera litura] CCE2 118263509 543 97.77 0 XP_035432002.2 Cholinesterase 2-like [Spodoptera frugiperda] 细胞色素P450 Cytochrome P450 CYP340AX8 118270728 492 99.80 0 WIE06254.1 Cytochrome CYP340AX8 [Spodoptera frugiperda] CYP4C1 118273959 495 100.00 0 XP_050563797.1 Cytochrome P450 4C1 [Spodoptera frugiperda] CYP4C3 118281843 485 99.38 0 XP_050549648.1 Cytochrome P450 4c3-like [Spodoptera frugiperda] CYP4D2 118263710 416 98.02 0 XP_035431241.2 Cytochrome P450 4d2-like [Spodoptera frugiperda] CYP4G15 118263448 566 99.82 0 XP_035431348.2 Cytochrome P450 [Spodoptera frugiperda] CYP4G15-2 118263357 557 100.00 0 XP_035431180.1 Cytochrome P450 4g15 [Spodoptera frugiperda] CYP4G74 118263457 563 99.82 0 XP_035431368.2 Cytochrome P450 4g15 [Spodoptera frugiperda] CYP49A1 118269105 540 100.00 0 XP_050560204.1 Probable cytochrome P450 49a1 [Spodoptera frugiperda] CYP6B1 118274106 564 100.00 0 XP_035447373.1 Cytochrome P450 6B1 [Spodoptera frugiperda] CYP6B2 118272349 511 99.80 0 XP_035444666.2 Cytochrome P450 6B2 [Spodoptera frugiperda] CYP6B6 118273912 504 99.80 0 XP_035447006.2 Cytochrome P450 6B6 isoform X1 [Spodoptera frugiperda] CYP6B7 118279835 514 99.61 0 XP_035455539.2 Cytochrome P450 6B7-like [Spodoptera frugiperda] CYP6I1 118263010 503 99.60 0 XP_050553196.1 Cytochrome P450 6l1 [Spodoptera frugiperda] CYP6K1 118274242 500 98.40 0 XP_035447568.2 Cytochrome P450 6k1 [Spodoptera frugiperda] CYP9E2 118264788 513 98.64 0 XP_035433316.2 Cytochrome P450 9e2 [Spodoptera frugiperda] CYP12A2 118263546 508 99.41 0 XP_050561169.1 Cytochrome P450 CYP12A2 [Spodoptera frugiperda] ATP结合盒转运蛋白ATP binding cassette transporter ABCG4 118265167 764 100.00 0 XP_050561670.1 ATP-binding cassette subfamily G member 4 isoform X1 [Spodoptera frugiperda] ABCB7 118282276 743 99.73 0 XP_035459161.2 Iron-sulfur clusters transporter ABCB7, mitochondrial isoform X1 [Spodoptera frugiperda] ABCG20 118270582 794 100.00 0 XP_022827321.1 ABC transporter G family member 20 isoform X1 [Spodoptera litura] 这些差异表达基因包括9个UDP-葡萄糖醛酸转移酶基因(命名为UGT2、UGT2-2、UGT2-3、UGT2-4、UGT33B13、UGT33J2、UGT40F3、UGT40F5和UGT40Q2)、8个谷胱甘肽硫转移酶基因(命名为GSTD1、GSTD2、GSTE1、GSTE2、GSTE14、GSTS1、GSTS2和GSTM1)、3个羧基/胆碱酯酶基因(命名为CCE1、CarE1和CCE2)、16个细胞色素P450基因(CYP340AX8、CYP4C1、CYP4C3、CYP4D2、CYP4G15、CYP4G15-2、CYP4G74、CYP49A1、CYP6B1、CYP6B2、CYP6B6、CYP6B7、CYP6I1、CYP6K1、CYP9E2和CYP12A2)和3个ATP结合盒转运蛋白基因(ABCG4、ABCB7和ABCG20)(表 3)。
随后,转录组中基因的FPKM值用来分析差异表达解毒酶基因的表达谱。UDP-葡萄糖醛酸转移酶基因中,8个基因(UGT2-2、UGT2-3、UGT2-4、UGT33B13、UGT33J2、UGT40F3、UGT40F5和UGT40Q2)在取食高粱的草地贪夜蛾幼虫中高表达,只有UGT2在取食玉米的幼虫中高表达(图 4-A)。取食高粱后,幼虫UGT40Q2诱导表达程度最高,但是UGT33B13表达量比取食玉米的表达量上调倍数更大,达到160倍(图 4-A)。与取食玉米的幼虫相比,所有差异表达的谷胱甘肽硫转移酶基因(GSTD1、GSTD2、GSTE1、GSTE2、GSTE14、GSTS1、GSTS2和GSTM1)和羧基/胆碱酯酶基因(CCE1、CarE1和CCE2)在取食高粱的幼虫中均诱导表达(图 4-B、C)。细胞色素P450基因中,13个P450基因(CYP340AX8、CYP4C1、CYP4C3、CYP4D2、CYP4G15、CYP4G15-2、CYP4G74、CYP6B2、CYP6B6、CYP6B7、CYP6I1、CYP6K1和CYP12A2)在取食高粱的草地贪夜蛾幼虫中诱导表达,仅有CYP49A1、CYP6B1和CYP9E2在取食玉米的幼虫中诱导表达(图 4-D)。其中,取食高粱后,幼虫CYP4G74诱导表达程度最高;与取食玉米相比,取食高粱的幼虫CYP4G74表达量上调超过80倍(图 4-D)。ATP结合盒转运蛋白基因中,ABCG4和ABCG20在取食玉米的幼虫中诱导表达,只有ABCB7在取食高粱的幼虫中诱导表达(图 4-E)。
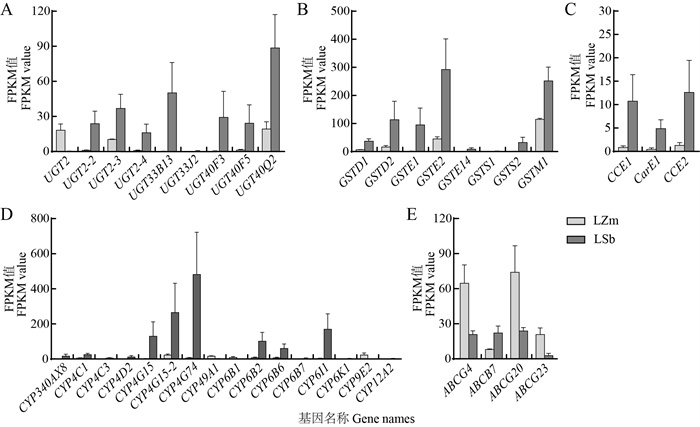 图 4 取食玉米和高粱的草地贪夜蛾幼虫差异表达解毒酶基因的FPKM值注:A,UDP-葡萄糖醛酸转移酶;B,谷胱甘肽硫转移酶;C,羧基/胆碱酯酶;D,细胞色素P450;E,ATP结合盒转运蛋白。LZm,取食玉米植株的幼虫;LSb,取食高粱植株的幼虫。图 5同。Fig. 4 The FPKM values of differentially expressed genes of detoxification enzymes in maize and sorghum-fed larvae of Spodoptera frugiperdaNote: A, UDP-glucosyltransferase; B, Glutathione S-transferase; C, Carboxyl/cholinesterase; D, Cytochrome P450; E, ATP binding cassette transporter. LZm, Larvae fed with maize plants; LSb, Larvae fed with sorghum plants. Same to Fig. 5.下载:
全尺寸图片
2.6 差异表达解毒酶基因的验证
随后,利用qRT-PCR验证上述筛选到差异表达解毒酶基因的表达情况。在UGTs中,6个基因(UGT2、UGT2-2、UGT2-4、UGT33B13、UGT40F3和UGT40F5)的表达发生显著变化,3个基因(UGT2-3、UGT33J2和UGT40Q2)表达无显著变化(图 5-A)。与取食玉米的幼虫相比,UGT2在取食高粱的草地贪夜蛾幼虫中表达受到抑制,取食高粱反而诱导了UGT2-2、UGT2-4、UGT33B13、UGT40F3和UGT40F5的表达(图 5-A)。幼虫取食高粱后UGT2-4和UGT33B13诱导表达程度最高,这两个基因的表达量分别上调达到9.68倍和42.18倍。差异表达基因GST只有4个基因(GSTE1、GSTE14、GSTS1和GSTS2)在取食高粱的幼虫中过表达,其余4个基因(GSTD1、GSTD2、GSTE2和GSTM1)的表达量与对照相比无显著差异(图 5-B)。GSTS1在取食高粱的幼虫中诱导表达程度最大,表达量上调超过11倍。羧基/胆碱酯酶基因CCE1和CCE2在取食高粱后诱导表达,CarE1无明显诱导(图 5-C)。
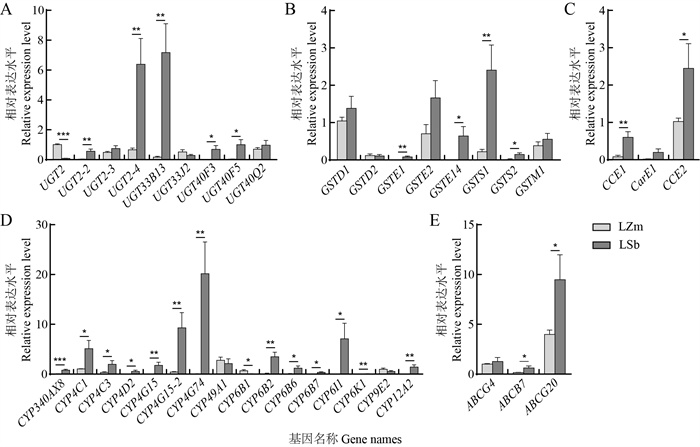 图 5 荧光定量PCR验证取食玉米和高粱的草地贪夜蛾幼虫差异表达解毒酶基因Fig. 5 Verification of differentially expressed genes of detoxification enzymes in maize and sorghum-fed larvae of Spodoptera frugiperda by quantitative real-time PCR下载:
全尺寸图片
细胞色素P450基因中,除CYP49A1和CYP9E2外,其余14个基因(CYP340AX8、CYP4C1、CYP4C3、CYP4D2、CYP4G15、CYP4G15-2、CYP4G74、CYP6B1、CYP6B2、CYP6B6、CYP6B7、CYP6I1、CYP6K1和CYP12A2)表达量在取食高粱后均发生了显著变化(图 5-D)。与取食玉米的对照幼虫相比,取食高粱显著诱导了幼虫13个基因(CYP340AX8、CYP4C1、CYP4C3、CYP4D2、CYP4G15、CYP4G15-2、CYP4G74、CYP6B2、CYP6B6、CYP6B7、CYP6I1、CYP6K1和CYP12A2)的表达,反而抑制了CYP6B1的表达(图 5-D)。CYP4G74在取食高粱的幼虫中的诱导表达程度最大,表达量上调超过288倍;随后是CYP4G15-2,表达量上调了21.63倍。ABC基因中,幼虫取食高粱后造成ABCB7和ABCG20过表达,并未影响ABCG4的表达(图 5-E)。
3. 结论与讨论
植物与昆虫的协同进化过程中,植食性昆虫种群的繁盛在一定程度上取决于其能找到合适的寄主植物,以及取食该寄主植物能获得满足生长发育的营养物质(Fraenkel,1959;Li et al.,2007;He et al.,2023)。自从草地贪夜蛾入侵我国以来,已经在除玉米外的寄主(小麦、高粱、水稻)上为害,并均能完成生活史(巴吐西等,2020;邱良妙等,2020;吕亮等,2022;雷春媚等,2023)。我国许多地区,玉米和小麦种植区域重叠,玉米和高粱种植区域和生育时期存在重叠,因此,急需加强草地贪夜蛾在不同寄主间的转移机制研究,尤其是如何快速适应不同寄主植物的转录调控机制,为绿色安全防控体系的建立夯实基础。
本研究对取食玉米和高粱24 h的草地贪夜蛾3龄幼虫进行有参转录组测序,共注释到1 454个差异表达基因,包括860个上调基因和594个下调基因,说明草地贪夜蛾幼虫通过改变体内基因的表达,对不同的寄主植物作出了快速的适应。其次,GO功能显著富集的功能条目中毒物代谢过程富集到30个差异表达基因;KEGG通路富集分析发现毒物代谢-其他酶、细胞色素P450对外源性药物的代谢、毒物代谢-细胞色素P450这3个通路涉及毒性化合物的解毒代谢,涉及基因数量分别为28个、25个和23个。结合先前的研究发现高粱中黄酮类化合物参与对草地贪夜蛾的防御(Grover et al.,2022)。这些结果表明高粱次生化合物参与防御草地贪夜蛾取食,降低草地贪夜蛾对高粱的适应性。昆虫会优先选择适合度高、营养丰富的寄主植物取食,从中获得生长发育、繁殖所需的营养物质(Behmer,2009;吕亮等,2022)。草地贪夜蛾在玉米上的适合度高于高粱(吕亮等,2022)。GO和KEGG富集发现碳水化合物代谢等能量代谢通路也显著富集,这可能暗示玉米和高粱中营养物质的差异也是造成草地贪夜蛾幼虫取食不同寄主后涉及能量代谢基因表达水平快速变化的重要因素,推测这些基因在草地贪夜蛾生长发育中发挥重要作用。
取食不同寄主植物会导致草地贪夜蛾解毒酶活性发生改变,而这些解毒酶基因的诱导表达是昆虫适应寄主次生化合物防御的重要方式(Li et al.,2007;鲁智慧等,2020)。植食性昆虫中主要的解毒酶家族包括UDP-葡萄糖醛酸转移酶、谷胱甘肽硫转移酶、羧基/胆碱酯酶、细胞色素P450和ATP结合盒转运蛋白,在植物次生化合物和杀虫剂解毒代谢中发挥了重要的作用(Luque et al.,2002;Li et al.,2007;Pearce et al.,2017;Shi et al.,2023)。本研究共发现39个差异表达的解毒酶基因,涉及UGTs、GSTs、CCEs、P450s和ABCs。其中,差异表达P450s的数量最多,有16个,占差异解毒酶基因总数的38%。这与草地贪夜蛾细胞色素P450基因家族与其余鳞翅目昆虫相比显著扩增密切相关,因为这种扩增涉及草地贪夜蛾食性、对毒性化合物的代谢等过程(Gui et al.,2022;朱克森等,2020)。本研究发现草地贪夜蛾幼虫取食高粱后,一些解毒酶基因被极显著诱导表达,比如,UGT33B13表达量上调42.18倍,GSTS1表达量上调超过11倍,CYP4G74的表达量上调超过288倍。这些结果表明草地贪夜蛾UGT33B13、GSTS1、CYP4G74等上调基因在适应高粱作为寄主的过程中发挥了重要作用。已有研究报道高粱次生化合物参与对植食性昆虫的抗性(Kariyat et al.,2019;Grover et al.,2022);反之,植食性昆虫也通过解毒酶基因的过表达来解毒代谢取食获得的毒性化合物(Heidel-Fischer and Vogel,2015;Ode,2019)。类似的结果也在一些昆虫对毒性化合物解毒和适应的研究中报道。棉蚜Aphis gossypii氟啶虫胺腈抗性品系中UGT344B4、UGT344C5、UGT344A11、UGT344A14和UGT344L2过表达(Ma et al.,2021)。褐飞虱Nilaparvata lugens对芦竹碱的解毒依赖于gst1-1过表达(Sun et al.,2013),NlGSTs1和NlGSTs2对杀虫剂抗性和寄主适应性方面的共同机制是氧化胁迫修复(Zhang et al.,2022)。苹果蠹蛾Cydia pomonella取食可以诱导梨果中槲皮素含量升高,槲皮素会对苹果蠹蛾和梨小食心虫Grapholita molesta的生长发育产生不利影响,苹果蠹蛾P450基因CYP6K1b和CYP6AW1,梨小食心虫P450基因CYP6B74和gm_13876参与对槲皮素的解毒(Zhang et al.,2024)。同样,美洲棉铃虫Helicoverpa zea的CYP6B类成员参与代谢寄主中的次生化合物,如花椒毒素、黄酮、α-萘黄酮、绿原酸、槲皮素和芸香苷等(Li et al.,2004);草地贪夜蛾CYP9A类成员CYP9A24、CYP9A28和CYP9A29对花椒毒素有高的解毒活性(Shi et al.,2023)。敲除SfABCC2可以降低草地贪夜蛾对Bt蛋白Cry1F的抗性(Abdelgaffar et al.,2021)。这些结果暗示解毒酶基因可能为植食性昆虫利用寄主植物次生化合物来适应不同寄主植物提供了生态机会。此外,有研究已经证实沉默草地贪夜蛾CYP302A1会导致幼虫在水稻植株上取食时死亡率的增加(Hafeez et al.,2022)。因此,草地贪夜蛾解毒酶基因在寄主适应过程中的功能研究,将有助于了解昆虫与寄主的适应基础。
综上,本研究通过对取食玉米和高粱的草地贪夜蛾幼虫进行有参转录组分析,并对获得差异表达解毒酶基因进行了解析与验证,发现草地贪夜蛾取食高粱显著诱导了UGT2-4、UGT33B13、GSTS1、CYP4G74和CYP4G15-2表达,说明这些基因在草地贪夜蛾适应寄主高粱中发挥了重要作用。本研究为探索草地贪夜蛾对玉米和高粱的寄主适应转录调控机制奠定了基础,后面将对这些重要基因的功能进行深入研究。
-
图 1 草地贪夜蛾幼虫取食玉米和高粱的差异表达基因分析
注:A,韦恩图;B,热图。LZm,取食玉米植株的幼虫;LSb,取食高粱植株的幼虫。
Fig. 1 Analysis of differentially expressed genes of Spodoptera frugiperda larvae feeding on maize and sorghum
Note: A, Venn diagram; B, Volcano plot. LZm, Larvae fed with maize plants; LSb, Larvae fed with sorghum plants.
下载:
全尺寸图片
图 2 取食玉米和高粱的草地贪夜蛾幼虫差异表达基因GO功能富集
Fig. 2 GO function enrichment of differentially expressed genes in Spodoptera frugiperda larvae feeding on maize and sorghum
下载:
全尺寸图片
图 3 取食玉米和高粱的草地贪夜蛾幼虫差异表达基因KEGG通路富集
Fig. 3 KEGG pathway enrichment of differentially expressed genes in Spodoptera frugiperda larvae feeding on maize and sorghum
下载:
全尺寸图片
图 4 取食玉米和高粱的草地贪夜蛾幼虫差异表达解毒酶基因的FPKM值
注:A,UDP-葡萄糖醛酸转移酶;B,谷胱甘肽硫转移酶;C,羧基/胆碱酯酶;D,细胞色素P450;E,ATP结合盒转运蛋白。LZm,取食玉米植株的幼虫;LSb,取食高粱植株的幼虫。图 5同。
Fig. 4 The FPKM values of differentially expressed genes of detoxification enzymes in maize and sorghum-fed larvae of Spodoptera frugiperda
Note: A, UDP-glucosyltransferase; B, Glutathione S-transferase; C, Carboxyl/cholinesterase; D, Cytochrome P450; E, ATP binding cassette transporter. LZm, Larvae fed with maize plants; LSb, Larvae fed with sorghum plants. Same to Fig. 5.
下载:
全尺寸图片
图 5 荧光定量PCR验证取食玉米和高粱的草地贪夜蛾幼虫差异表达解毒酶基因
Fig. 5 Verification of differentially expressed genes of detoxification enzymes in maize and sorghum-fed larvae of Spodoptera frugiperda by quantitative real-time PCR
下载:
全尺寸图片
表 1 本试验使用引物
Table 1 Primers used in this study
名称Name 正向引物Forward primer 反向引物Reverse primer UGT2 AGGAAGGACTTTTGATCTCG GTATGATAGCAGCGTGGAAG UGT2-2 CAGCTATTCTTTCCCATCCT TAATGCGAACCCTCTGTTTA UGT2-3 TGGAAGAGCTATGGACAAGA TATCGGACCTCACTGTATGG UGT2-4 TCATCCAAAACTGAAGCTGT TCTCTCAGCATTGAACGACT UGT33B13 GCTGTTTTTGAATGCTCATC GTCCGCAGGTAATTCTTTCT UGT33J2 ACACCAGCGAACTTAACAGA GCTTCCCTTTGATGATCTCT UGT40F3 CACCGATCATCACAGTTTTT CATCATGGAAAACACGAAGT UGT40F5 TTGGTAATCCAAACGTCAAC GTTGTATGAGGGGTTTAGGG UGT40Q2 TGACCATTGCAAATAGATCC ATCCAGCATACAAGTGATGG GSTD1 TTCGAACTGGTGAAAACAAC CTCAGTTTTGGCTTTGAATG GSTD2 CATTCAGGCAAGAGAATCTG AAATGTCAGCCAATGTCATC GSTE1 ATGCAACCATGAAGTACCTG TCCGAATACAGCTGGTAAAA GSTE2 TGGACCAGTGCATATTCTTC GTAGGCTTCGTCAATGTCTG GSTE14 TTCCAAAGAGGAAGGAAGAC TATATTCGAGAGTGGCCAGA GSTS1 TGGGGTGACTTTGTACTCTG CTCCTTTACTCCTGGCAGAT GSTS2 TCGGTTGGTTTGACTACATC TACAGCATCAGCGTAGGTCT GSTM1 TGCAGGCCTACATTCTGTAT TTGTCTTAGCATCCTCTGGA CCE1 ATCCATACGATGCAGTCAAC CGTAAATAGTGGCAACAAGG CarE1 TTTTATGGAGACCTGCTTGA ATTGACCTGGTCCTTGAAAT CCE2 TCAAGTGAACCCTGACAATC TAGATCCAAACCATCACTGG CYP340AX8 TACTGCGCTGTTCCAATTAT AACAGGGTTACTAGGCAAGG CYP4C1 TGCTGATGTGTCTGATGGTA TAAACGTGTTGACCTCATCC CYP4C3 TTGCAACCTGACGTACTCTT CAAAGTCAGCAATCTTGTCC CYP4D2 CGATGTTGGAATAAGGAACA GTCGTGACCCTCAAACATAA CYP4G15 ACTTTTGGACATCATTCACG GCCTTTGAAGACTGTGTCTG CYP4G15-2 CACCAGGATATCCAAGACAA AACATTCTGAGGGTTTCCAT CYP4G74 TCATGGTCTTACCAACAAGG GATTCGATCATCAAGTCCAA CYP49A1 GACTAGGTTTGCTGGAAGGT TTGTTCTCATCTCCGTGAAC CYP6B1 ACCAACATAGTGGTGGAGAG ATTAGGGCGAATCTTTTACC CYP6B2 GACGATTTGCTAATGACAGC CTCATCGACTCGTAAAATGC CYP6B6 ATAACGAAGTTGCTGTCCAA ATTCAACCGTATTCCACCTT CYP6B7 TAGCTGACGAGCTCTACTGG CAAAGAACAGGTTCTGCATC CYP6I1 GAGAAAGAAGACAGGGGAAA GCCAATGTTGTTGATGAAGT CYP6K1 AACGGTTTCTTCCTGAGAAC AGCAGGGTGGTAGAAGAGTC CYP9E2 TAGGGAAGAAGGCAGTCATA TCTCTACGAGCCTTTAGTGC CYP12A2 AGGGCACCCATGATAATACT GTGTGAGCATTGTGATCCTT ABCG4 GCAGTGAACAAAGGAAACTG GTGCAAGGTTCGTAGAGTTG ABCB7 GGACTGGCTTTTACTGGTCT TTCTGCAGCTCGTACTTCTC ABCG20 CGTCTTCGGAAGTACAAGTG TCTTGTTGCCGTAGATAGGA RPL10 TGGGTAAGAAGAAGGCTACG TGTTGATGCGGATGACAT 表 2 取食玉米和高粱的草地贪夜蛾幼虫转录组数据质控
Table 2 Quality control of transcriptome data from Spodoptera frugiperda larvae feeding on maize and sorghum
样品
Sample原始测序量(G)
Raw bases过滤后测序量(G)
Clean basesQ20值(%)
Q20Q30值(%)
Q30GC含量(%)
GCLZm_1 7.38 7.01 98.39 95.50 45.64 LZm_2 7.23 6.81 98.19 95.06 48.29 LZm_3 6.47 5.90 98.18 95.00 48.39 LSb_1 6.60 6.11 98.33 95.33 49.16 LSb_2 7.53 7.23 98.46 95.81 47.29 LSb_3 6.51 6.15 98.25 95.19 48.73 注:LZm,取食玉米植株的幼虫;LSb,取食高粱植株的幼虫。Note: LZm, Larvae fed with maize plants; LSb, Larvae fed with sorghum plants. 表 3 取食玉米和高粱草地贪夜蛾幼虫差异表达解毒酶基因注释
Table 3 Annotation of differentially expressed genes of detoxification enzymes in Spodoptera frugiperda larvae feeding on maize and sorghum
名称
Name基因编号
Gene ID开放阅读框(aa)
Open reading frame相似性(%)
IdentityE值
E-value最佳比对结果
BLASTx best hitUDP-葡萄糖醛酸转移酶UDP-glucosyltransferase UGT2 118267688 544 99.82 0 XP_035437704.2 UDP-glucosyltransferase 2 [Spodoptera frugiperda] UGT2-2 118277899 524 99.62 0 XP_035452798.2 UDP-glucosyltransferase 2 [Spodoptera frugiperda] UGT2-3 118277900 523 98.09 0 XP_050556287.1 UDP-glucosyltransferase 2-like [Spodoptera frugiperda] UGT2-4 118279411 525 98.29 0 XP_035454996.2 UDP-glucosyltransferase 2 [Spodoptera frugiperda] UGT33B13 118279155 515 98.83 0 QGA73337.1 UDP-glucuronosyltransferase 33B13 [Spodoptera frugiperda] UGT33J2 118279189 518 97.30 0 XP_050554448.1 UDP-glycosyltransferase UGT5 isoform X5 [Spodoptera frugiperda] UGT40F3 118277904 522 99.43 0 XP_035452810.2 UDP-glycosyltransferase UGT5-like [Spodoptera frugiperda] UGT40F5 118277903 522 99.04 0 QGA73343.1 UDP-glucuronosyltransferase 40F5 [Spodoptera frugiperda] UGT40Q2 118277768 523 100.00 0 XP_035452567.1 UDP-glucosyltransferase 2 [Spodoptera frugiperda] 谷胱甘肽硫转移酶Glutathione S-transferase GSTD1 118269545 221 99.55 2.00E-158 XP_035440580.2 Glutathione S-transferase 1 [Spodoptera frugiperda] GSTD2 118277778 217 100.00 0 XP_035452574.1 Glutathione S-transferase 1 [Spodoptera frugiperda] GSTE1 118267113 222 98.65 4.00E-159 XP_035436804.2 Glutathione S-transferase 1-like [Spodoptera frugiperda] GSTE2 118266709 223 99.10 6.00E-160 XP_050559253.1 Glutathione S-transferase 1 [Spodoptera frugiperda] GSTE14 118282244 217 99.54 5.00E-159 QGA73323.1 Glutathione S-transferase GST epsilon14 [Spodoptera frugiperda] GSTS1 118270053 212 100.00 2.00E-154 UNG44362.1 Glutathione S-transferase [Spodoptera frugiperda] GSTS2 118272232 204 97.55 5.00E-142 XP_050549803.1 Glutathione S-transferase 2-like [Spodoptera frugiperda] GSTM1 118262355 151 98.01 5.00E-101 QGA73335.1 Microsomal glutathione S-transferase mGST1 transcript variant 1 [Spodoptera frugiperda] 羧基/胆碱酯酶Carboxyl/cholinesterase CCE1 118262879 554 98.74 0 XP_035430420.2 Cholinesterase 1 [Spodoptera frugiperda] CarE1 118276151 537 87.52 0 ABE01157.2 Carboxylesterase [Spodoptera litura] CCE2 118263509 543 97.77 0 XP_035432002.2 Cholinesterase 2-like [Spodoptera frugiperda] 细胞色素P450 Cytochrome P450 CYP340AX8 118270728 492 99.80 0 WIE06254.1 Cytochrome CYP340AX8 [Spodoptera frugiperda] CYP4C1 118273959 495 100.00 0 XP_050563797.1 Cytochrome P450 4C1 [Spodoptera frugiperda] CYP4C3 118281843 485 99.38 0 XP_050549648.1 Cytochrome P450 4c3-like [Spodoptera frugiperda] CYP4D2 118263710 416 98.02 0 XP_035431241.2 Cytochrome P450 4d2-like [Spodoptera frugiperda] CYP4G15 118263448 566 99.82 0 XP_035431348.2 Cytochrome P450 [Spodoptera frugiperda] CYP4G15-2 118263357 557 100.00 0 XP_035431180.1 Cytochrome P450 4g15 [Spodoptera frugiperda] CYP4G74 118263457 563 99.82 0 XP_035431368.2 Cytochrome P450 4g15 [Spodoptera frugiperda] CYP49A1 118269105 540 100.00 0 XP_050560204.1 Probable cytochrome P450 49a1 [Spodoptera frugiperda] CYP6B1 118274106 564 100.00 0 XP_035447373.1 Cytochrome P450 6B1 [Spodoptera frugiperda] CYP6B2 118272349 511 99.80 0 XP_035444666.2 Cytochrome P450 6B2 [Spodoptera frugiperda] CYP6B6 118273912 504 99.80 0 XP_035447006.2 Cytochrome P450 6B6 isoform X1 [Spodoptera frugiperda] CYP6B7 118279835 514 99.61 0 XP_035455539.2 Cytochrome P450 6B7-like [Spodoptera frugiperda] CYP6I1 118263010 503 99.60 0 XP_050553196.1 Cytochrome P450 6l1 [Spodoptera frugiperda] CYP6K1 118274242 500 98.40 0 XP_035447568.2 Cytochrome P450 6k1 [Spodoptera frugiperda] CYP9E2 118264788 513 98.64 0 XP_035433316.2 Cytochrome P450 9e2 [Spodoptera frugiperda] CYP12A2 118263546 508 99.41 0 XP_050561169.1 Cytochrome P450 CYP12A2 [Spodoptera frugiperda] ATP结合盒转运蛋白ATP binding cassette transporter ABCG4 118265167 764 100.00 0 XP_050561670.1 ATP-binding cassette subfamily G member 4 isoform X1 [Spodoptera frugiperda] ABCB7 118282276 743 99.73 0 XP_035459161.2 Iron-sulfur clusters transporter ABCB7, mitochondrial isoform X1 [Spodoptera frugiperda] ABCG20 118270582 794 100.00 0 XP_022827321.1 ABC transporter G family member 20 isoform X1 [Spodoptera litura] -
Abdelgaffar H, Perera OP, Jurat-Fuentes JL. ABC transporter mutations in Cry1F-resistant fall armyworm (Spodoptera frugiperda) do not result in altered susceptibility to selected small molecule pesticides[J]. Pest Management Science, 2021, 77(2): 949-955. doi: 10.1002/ps.6106 Anders S, Huber W. Differential expression analysis for sequence count data[J]. Genome Biology, 2010, 11(10): R106. doi: 10.1186/gb-2010-11-10-r106 巴吐西, 张云慧, 张智, 等. 草地贪夜蛾对小麦和玉米的产卵选择性及其种群生命表[J]. 植物保护, 2020, 46(1): 17-23 Ba TX, Zhang YH, Zhang Z, et al. The host preference and population life tables of Spodoptera frugiperda (Lepidoptera: Noctuidae) fed on maize and wheat[J]. Plant Protection, 2020, 46(1): 17-23. Behmer ST. Insect herbivore nutrient regulation[J]. Annual Review of Entomology, 2009, 54(1): 165-187. doi: 10.1146/annurev.ento.54.110807.090537 Fraenkel GS. The raison d'Être of secondary plant substances[J]. Science, 1959, 129(3361): 1466-1470. doi: 10.1126/science.129.3361.1466 Grover S, Shinde S, Puri H, et al. Dynamic regulation of phenylpropanoid pathway metabolites in modulating sorghum defense against fall armyworm[J]. Frontiers in Plant Science, 2022, 13: 1019266. doi: 10.3389/fpls.2022.1019266 Gui F, Lan T, Zhao Y, et al. Genomic and transcriptomic analysis unveils population evolution and development of pesticide resistance in fall armyworm Spodoptera frugiperda[J]. Protein & Cell, 2022, 13(7): 513-531. Guo Z, Jin R, Guo Z, et al. Insecticide susceptibility and mechanism of Spodoptera frugiperda on different host plants[J]. Journal of Agricultural and Food Chemistry, 2022, 70(36): 11367-11376. doi: 10.1021/acs.jafc.2c04189 Hafeez M, Li X, Chen L, et al. Molecular characterization and functional analysis of cytochrome P450-mediated detoxification CYP302A1 gene involved in host plant adaptation in Spodoptera frugiperda[J]. Frontiers in Plant Science, 2022, 13: 1079442. Han S, Qin Q, Wang D, et al. Selection and evaluation of reference genes for qRT-PCR in Spodoptera frugiperda (Lepidoptera: Noctuidae)[J]. Insects, 2021, 12(10): 902. doi: 10.3390/insects12100902 He L, Shi Y, Ding W, et al. Cytochrome P450s genes CYP321A9 and CYP9A58 contribute to host plant adaptation in the fall armyworm Spodoptera frugiperda[J]. Pest Management Science, 2023, 79(5): 1783-1790. doi: 10.1002/ps.7355 Heidel-Fischer HM, Vogel H. Molecular mechanisms of insect adaptation to plant secondary compounds[J]. Current Opinion in Insect Science, 2015, 8: 8-14. doi: 10.1016/j.cois.2015.02.004 洪霖, 贾志新, 钟秋瓒, 等. 江西省九江市发现草地贪夜蛾为害高粱[J]. 植物保护学报, 2023, 50(6): 1651-1652 Hong L, Jia ZX, Zhong QZ, et al. The fall armyworm Spodoptera frugiperda is found as pest damaging Sorghum bicolor in Jiujiang City, Jiangxi Province[J]. Journal of Plant Protection, 2023, 50(6): 1651-1652. Jiang NJ, Mo BT, Guo H, et al. Revisiting the sex pheromone of the fall armyworm Spodoptera frugiperda, a new invasive pest in South China[J]. Insect Science, 2022, 29(3): 865-878. doi: 10.1111/1744-7917.12956 姜玉英, 刘杰, 谢茂昌, 等. 2019年我国草地贪夜蛾扩散为害规律观测[J]. 植物保护, 2019, 45(6): 10-19 Jiang YY, Liu J, Xie MC, et al. Observation on law of diffusion damage of Spodoptera frugiperda in China in 2019[J]. Plant Protection, 2019, 45(6): 10-19. Kariyat RR, Gaffoor I, Sattar S, et al. Sorghum 3-deoxyanthocyanidin flavonoids confer resistance against corn leaf aphid[J]. Journal of Chemical Ecology, 2019, 45(5-6): 502-514. doi: 10.1007/s10886-019-01062-8 雷春媚, 肖勇, 吴雨洪, 等. 四种十字花科蔬菜对草地贪夜蛾生长发育和繁殖的影响[J]. 应用昆虫学报, 2023, 60(4): 1108-1115 Lei CM, Xiao Y, Wu YH, et al. Development and reproduction of Spodoptera frugiperda on four cruciferous vegetables[J]. Chinese Journal of Applied Entomology, 2023, 60(4): 1108-1115. Li X, Baudry J, Berenbaum MR, et al. Structural and functional divergence of insect CYP6B proteins: From specialist to generalist cytochrome P450[J]. Proceedings of the National Academy of Sciences of the United States of America, 2004, 101(9): 2939-2944. Li X, Schuler MA, Berenbaum MR. Molecular mechanisms of metabolic resistance to synthetic and natural xenobiotics[J]. Annual Review of Entomology, 2007, 52(1): 231-253. doi: 10.1146/annurev.ento.51.110104.151104 刘彬, 黄博, 赵军, 等. 2019年秋季河南新乡草地贪夜蛾发生调查[J]. 植物保护, 2020, 46(5): 181-185 Liu B, Huang B, Zhao J, et al. Occurrence of Spodoptera frugiperda in Xingxiang City, Henan province in autumn 2019[J]. Plant Protection, 2020, 46(5): 181-185. 刘博, 李志红, 郭韶堃. 草地贪夜蛾入侵机制概述[J]. 植物保护学报, 2022, 49(5): 1313-1328 Liu B, Li ZH, Guo SK. Overview of the invasion mechanism of fall armyworm Spodoptera frugiperda[J]. Journal of Plant Protection, 2022, 49(5): 1313-1328. 刘伟, 徐强, 黄丽莉, 等. 草地贪夜蛾不同季节取食玉米叶和大豆叶生活史特性比较[J]. 江西农业大学学报, 2021, 43(5): 1032-1043 Liu W, Xu Q, Huang LL, et al. A comparison of life-history traits of the fall armyworm Spodoptera frugiperda feeding on the corn leaves and the soybean leaves in different seasons[J]. Acta Agriculturae Universitatis Jiangxiensis, 2021, 43(5): 1032-1043. Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method[J]. Methods, 2001, 25(4): 402-408. doi: 10.1006/meth.2001.1262 鲁智慧, 陈亚平, 周叆春, 等. 不同寄主植物继代饲养后草地贪夜蛾幼虫生理酶活性差异[J]. 环境昆虫学报, 2020, 42(6): 1361-1368 doi: 10.3969/j.issn.1674-0858.2020.06.10 Lu ZH, Chen YP, Zhou AC, et al. Effects of multi-generation feeding with different host plants on activities of enzyme in Spodoptera frugiperda larvae[J]. Journal of Environmental Entomology, 2020, 42(6): 1361-1368. doi: 10.3969/j.issn.1674-0858.2020.06.10 Luque T, Okano K, O'Reilly DR. Characterization of a novel silkworm (Bombyx mori) phenol UDP-glucosyltransferase[J]. European Journal of Biochemistry, 2002, 269(3): 819-825. doi: 10.1046/j.0014-2956.2001.02723.x 吕亮, 夏红霞, 郭蕾, 等. 草地贪夜蛾对玉米和高粱的产卵选择及寄主适合度[J]. 应用昆虫学报, 2022, 59(3): 542-550 Lv L, Xia HX, Guo L, et al. Effect of feeding Spodoptera frugiperda corn or sorghum on oviposition site selection and fitness[J]. Chinese Journal of Applied Entomology, 2022, 59(3): 542-550. Ma K, Tang Q, Liang P, et al. UDP-glycosyltransferases from the UGT344 family are involved in sulfoxaflor resistance in Aphis gossypii Glover[J]. Insects, 2021, 12(4): 356. doi: 10.3390/insects12040356 孟彦, 孟宪政, 陈敏菊, 等. 热带糯质高粱种质选育及改良利用[J]. 中国农学通报, 2020, 36(15): 37-42 Meng Y, Meng X, Chen M, et al. Sorghum germplasm: breeding and improvement[J]. Chinese Agricultural Science Bulletin, 2020, 36(15): 37-42. Montezano DG, Specht A, Sosa-Gómez DR, et al. Host plants of Spodoptera frugiperda (Lepidoptera: Noctuidae) in the Americas[J]. African Entomology, 2018, 26(2): 286-300. doi: 10.4001/003.026.0286 Mortazavi A, Williams BA, McCue K, et al. Mapping and quantifying mammalian transcriptomes by RNA-Seq[J]. Nature Methods, 2008, 5(7): 621-628. doi: 10.1038/nmeth.1226 Nagoshi R, Meagher R. Review of fall armyworm (Lepidoptera: Noctuidae) genetic complexity and migration[J]. Florida Entomologist, 2008, 91(4): 546-554. Ode PJ. Plant toxins and parasitoid trophic ecology[J]. Current Opinion in Insect Science, 2019, 32: 118-123. doi: 10.1016/j.cois.2019.01.007 Pashley DP. Host-associated genetic differentiation in fall armyworm (Lepidoptera: Noctuidae): A sibling species complex[J]. Annals of the Entomological Society of America, 1986, 79(6): 898-904. doi: 10.1093/aesa/79.6.898 Pearce SL, Clarke DF, East PD, et al. Genomic innovations, transcriptional plasticity and gene loss underlying the evolution and divergence of two highly polyphagous and invasive Helicoverpa pest species[J]. BMC Biology, 2017, 15(1): 63. doi: 10.1186/s12915-017-0402-6 Pertea M, Pertea GM, Antonescu CM, et al. StringTie enables improved reconstruction of a transcriptome from RNA-seq reads[J]. Nature Biotechnology, 2015, 33(3): 290-295. doi: 10.1038/nbt.3122 邱良妙, 刘其全, 杨秀娟, 等. 草地贪夜蛾对水稻和玉米的取食和产卵选择性与适合度[J]. 昆虫学报, 2020, 63(5): 604-612 Qiu ML, Liu QQ, Yang XJ, et al. Feeding and oviposition preference and fitness of the fall armyworm, Spodoptera frugiperda (Lepidoptera: Noctuidae), on rice and maize[J]. Acta Entomologica Sinica, 2020, 63(5): 604-612. Schoonhoven LM, van Loon JJA, Dicke M. Insect-Plant Biology[M]. Oxford: Oxford University Press, 2005: 169-208. Shi Y, Liu Q, Lu W, et al. Divergent amplifications of CYP9A cytochrome P450 genes provide two noctuid pests with differential protection against xenobiotics[J]. Proceedings of the National Academy of Sciences of the United States of America, 2023, 120(3): e2308685120. 苏湘宁, 李传瑛, 许益镌, 等. 草地贪夜蛾对5种寄主植物和6种杂草的取食选择性和适应性[J]. 环境昆虫学报, 2022, 44(2): 263-272 doi: 10.3969/j.issn.1674-0858.2022.02.1 Su XN, Li CY, Xu YJ, et al. Feeding preference and adaptability of fall armyworm Spodoptera frugiperda on five species of host plants and six weeds[J]. Journal of Environmental Entomology, 2022, 44(2): 263-272. doi: 10.3969/j.issn.1674-0858.2022.02.1 Sun X, Hu C, Jia H, et al. Case study on the first immigration of fall armyworm, Spodoptera frugiperda invading into China[J]. Journal of Integrative Agriculture, 2021, 20(3): 664-672. doi: 10.1016/S2095-3119(19)62839-X Sun XQ, Zhang MX, Yu JY, et al. Glutathione S-transferase of brown planthoppers (Nilaparvata lugens) is essential for their adaptation to gramine-containing host plants[J]. PLoS ONE, 2013, 8(5): e64026. doi: 10.1371/journal.pone.0064026 Xiao H, Ye X, Xu H, et al. The genetic adaptations of fall armyworm Spodoptera frugiperda facilitated its rapid global dispersal and invasion[J]. Molecular Ecology Resources, 2020, 20(4): 1050-1068. doi: 10.1111/1755-0998.13182 Zhang SP, Bai B, Chen GM, et al. Secondary metabolites in host pears defense against two fruit borers and cytochrome-P450-mediated counter-defense[J]. iScience, 2024, 27(4): 109518. doi: 10.1016/j.isci.2024.109518 Zhang Y, Yang B, Yu N, et al. Insecticide resistance associated overexpression of two sigma GST genes assists Nilaparvata lugens to remedy oxidative stress from feeding on resistant rice variety[J]. Pesticide Biochemistry and Physiology, 2022, 188: 105230. doi: 10.1016/j.pestbp.2022.105230 朱克森, 黄钧鸿, 冯启理, 等. 草地贪夜蛾与斜纹夜蛾解毒相关基因的比较分析[J]. 环境昆虫学报, 2020, 42(2): 318-328 doi: 10.3969/j.issn.1674-0858.2020.02.11 Zhu KS, Huang JH, Feng QL, et al. Comparative analysis of detoxification related genes in Spodoptera frugiperda and Spodoptera litura[J]. Journal of Environmental Entomology, 2020, 42(2): 318-328. doi: 10.3969/j.issn.1674-0858.2020.02.11
