
Comparative analysis of cuticular hydrocarbon profiles among three dominant tenebrionid species (Coleoptera: Tenebrionidae) from the Turpan Basin
-
摘要:目的
昆虫可利用其表皮碳氢化合物(CHCs)减少蒸腾作用带来的水分损失,使其能够在干旱环境下生存和繁殖,而且不同物种之间关键CHCs的差异可用于物种鉴定。
方法本研究以吐鲁番盆地3种优势荒漠拟步甲(何氏胖漠甲Trigonoscelis holdereri、谢氏宽漠甲Sternoplax szechenyi、隆胸鳖甲Colposcelis montivaga)为研究对象,通过气相色谱-质谱联用(GC-MS)技术解析其CHCs组成特征,探讨其对极端干旱环境的适应性及在分类上的应用。
结果CHCs组成与干旱适应:共鉴定44种CHCs,正构烷烃为核心成分(47.93%~53.57%),以C27、C29、C31等奇数长链烷烃为主,短链烷烃(< C20)仅占4种,其中何氏胖漠甲含C34-C40超长链烷烃。异构烷烃以单甲基支链烷烃为主(34.74%~47.06%),多甲基烷烃(1.67%~5.41%)和烯烃(2.57%~6.28%)占比最低。主成分分析显示3种拟步甲CHCs组成高度相似,与沙漠蝗虫Schistocerca gregaria、红胡须蚁Pogonomyrmex barbatus等类群趋同,与湿润生境拟步甲趋异,验证了通过富集长链正构烷烃、增加单甲基支链烷烃及缩减多甲基烷烃的保水策略。基于11种关键差异CHCs的判别分析(Wilks'λ = 0,P < 0.001)可有效区分3种物种,聚类结果与COI-28S联合基因系统发育树一致(BPP = 1.00),表明CHCs具有物种特异性分类潜力。热图分析显示种内CHCs相似度高于种间,支持其作为形态鉴定的补充工具。
结论本研究揭示了3种拟步甲CHCs的干旱适应模式,并证实CHCs在同域种鉴定中的有效性,为解析荒漠昆虫环境适应机制提供参考依据。
Abstract:AimInsects can utilize their cuticular hydrocarbons (CHCs) to reduce water loss caused by transpiration, enabling them to survive and reproduce in arid environments. Moreover, the differences in key CHCs among different species can be used for species identification.
MethodsThis study investigated the CHCs profiles of three dominant desert tenebrionid beetles (Trigonoscelis holdereri, Sternoplax szechenyi, and Colposcelis montivaga) in the Turpan Basin using gas chromatography-mass spectrometry (GC-MS), aiming to elucidate their adaptation to extreme aridity and taxonomic applications.
ResultsKey findings revealed: CHC composition and arid adaptation: A total of 44 CHCs were identified, dominated by n-alkanes (47.93%~53.57%) that primarily consisted of odd-numbered long-chain alkanes (C27, C29, C31) with only four short-chain alkanes (< C20), while T. holdereri uniquely contained ultra-long-chain alkanes (C34-C40). Mono-methyl branched alkanes constituted the major iso-alkane fraction (34.74%~47.06%), while poly-methylated alkanes (1.67%~5.41%) and alkenes (2.57%~6.28%) were minimal. Principal component analysis (PCA) revealed convergent CHC profiles among the three tenebrionids with desert-adapted arthropods (Schistocerca gregaria and Pogonomyrmex barbatus) but divergent from mesophilic tenebrionids, supporting a water conservation strategy through long-chain n-alkane dominance, mono-methyl branching optimization, and poly-methylation suppression.Chemotaxonomic significance: Discriminant analysis based on 11 diagnostic CHC markers (Wilks'λ = 0, P < 0.001) achieved perfect species discrimination. Clustering patterns aligned with a concatenated COI-28S phylogeny (BPP = 1.00), confirming species-specific CHC signatures. Heatmap analysis demonstrated higher intraspecific CHC homogeneity than interspecific variability, validating their role as a complementary tool for morphological taxonomy.
ConclusionThis study delineates xeromorphic CHC adaptation patterns in desert tenebrionids and establishes CHCs as robust biomarkers for sympatric species delimitation, advancing our understanding of insect adaptive evolution in extreme arid environments.
-
Keywords:
- Cuticular hydrocarbons /
- Tenebrionidae /
- sympatric species /
- arid adaptation /
- chemotaxonomy /
- Turpan Basin
-
拟步甲科Tenebrionidae(以下简称拟步甲)隶属鞘翅目Coleoptera多食亚目Polyphaga拟步甲总科Tenebrionoidea,是鞘翅目中物种最丰富的科之一,全世界大约已描述的物种数量超过3万种,约占拟步甲总科物种数量的62.5%,广泛分布于中亚地区(Bouchard et al., 2021)。其中,漠甲亚科Pimeliinae全世界已记录39族310属3 000余种,中国已知12族44属257种,在高温干旱、降水量少、植被稀少等资源匮乏生境中充分占据生态位(巴义彬,2012)。新疆大部分地区为干旱和半干旱地区,六分之一的地区被沙漠覆盖,由于其特殊的地理位置,该地区成为耐旱昆虫物种丰富度最高的地区之一(Li et al., 2022)。
随着全球气候变暖趋势的加快,极端天气频繁出现,高温干旱环境成为生物面临的重要问题(Coumou and Rahmstorf, 2012)。昆虫的比表面积大,更容易脱水,其角质层的蒸腾作用是体内水分流失的主要途径,而表皮碳氢化合物可以通过减少蒸腾带来的损失,从而达到保水抗旱的目的(Menzel et al., 2018)。昆虫表皮碳氢化合物(Cuticular hydrocarbons,以下简称CHCs)是稳定存在于昆虫表皮上的正构烷烃、不饱和烃和甲基支链烃的混合物(Ginzel and Blomquist, 2016)。上世纪四十年代,CHCs首次发现在昆虫体内具有潜在的保水功能(Wigglesworth,1945)。一般而言,正构烷烃的碳链越长,保水能力越强(Gibbs et al., 1997)。烯烃由于其不饱和性质在保水方面的作用较小,主要负责信息交流。在不同的环境条件下,已经报道了部分昆虫CHCs成分具有可塑性。例如,黑腹果蝇Drosophila melanogaster通过增加烷烃的生物合成来应对干旱胁迫,而适应寒冷环境的黑腹果蝇处于冬季生殖休眠期间则会显著增加长链CHCs的比例,同时降低短链CHCs的相对含量以维持生理稳态(Rouault et al., 2004;Stinziano et al., 2015;Ala‐Honkola et al., 2020);干旱胁迫下,阿根廷蚂蚁Linepithema humile CHCs中的正构烷烃和正构烯烃的含量更高,而三甲基烷烃的含量则减少(Buellesbach et al., 2018);切胸蚁属Temnothorax longispinosus和T. ambiguus的CHCs中包含较长的正构烷烃和较少的二甲基烷烃(Menzel et al., 2018)。然而,CHCs的种类及含量在物种之间表现出重要变化,反映了其对干旱环境的适应性(Kwan and Rundle, 2010)。例如,拟步甲的CHCs特殊特征是支链烷烃的种类更多,被认为是对干旱环境的生理适应(Hadley and Schultz, 1987)。
环境虽然是影响CHCs组成变化的重要因素,但CHCs仍具有遗传性和物种特异性(Kather and Martin, 2012),因此可作为一种有效的分类特征(Dallerac et al., 2000)。与形态分类特征相比,CHCs具有较高的多态性,可作为形态鉴定的补充工具(Akino et al., 2002;Lucas et al., 2002;Martin et al., 2008;Guillem et al., 2012)。此外,利用CHCs进行分类鉴定具有不受样本保存方式、不损坏外部形态、不受性别和龄期影响的优势(高明媛,2001)。目前,利用CHCs进行分类鉴定已经广泛应用于天牛(王书平等,2017)、蜣螂(Niogret et al., 2019)、蓟马(赵成银等,2011)、棉铃虫Helicoverpa armigera(高明媛等,1999)、桔小实蝇Bactrocera dorsalis(林涛等,2016)、白蚁(戴华国等,2004;张红兵等,2005)、蜜蜂(王子琪和谭垦,2024)和火蚁(李群臣等,2022)等昆虫中。
在吐鲁番地区的本底调查中,共采集5 000余头拟步甲科昆虫,其中何氏胖漠甲Trigonoscelis holdereri、谢氏宽漠甲Sternoplax szechenyi和隆胸鳖甲Colposcelis montivaga,分别占总数的65.08%、9.41%、24.99%,为当地优势拟步甲,且3种步甲均属漠甲亚科昆虫。CHCs可以通过调节干旱环境下昆虫的水分损失,在耐受干旱胁迫方面发挥重要作用(Bazinet et al., 2010;Edney,2012;Ferveur et al., 2018)。然而,目前关于拟步甲CHCs的研究主要聚焦于宿主识别(Fürstenau and Hilker, 2017)、性别认同(Calla-Quispe et al., 2021)、群居信息素(Hassemer et al., 2016)及化学行为生态学(Das et al., 2025)等方面,而关于其对干旱环境的适应多集中于体色、体形、足、翅等形态适应特点的研究,对胖漠甲属、宽漠甲属及胸鳖甲属相关物种在干旱环境下的CHCs研究尚未见报道。为此,本研究基于昆虫化学生态学,应用气相色谱-质谱联用(Gas Chromatography-Mass Spectrometry,GC-MS)技术,采用液体进样法,对3种拟步甲雌性成虫的CHCs进行对比和分析。以期为深入研究其干旱环境适应性提供新的技术手段和详实可靠的基础数据,同时为快速鉴别奠定基础。本研究聚焦于以下两个科学问题:
1. 极端干旱条件下的3种拟步甲CHCs组成,以及与干旱区其他类群昆虫CHCs组成是否相似?
2. CHCs在同域分布的3种拟步甲物种鉴定中的作用?
1. 材料方法
1.1 供试昆虫的采集及饲养
吐鲁番盆地(89.45°E、42.90°N)夏季平均气温为28.6~32.0℃(1991-2020年平均值),夏季降水量6.6~13.3 mm,地表温度可达80℃,吐鲁番盆地相对于周边地势低洼,气温不宜散发,故气候炎热,7-8月为当地最高温月份,平均温度可达36℃,平均降水量仅为4 mm(王永兴,2000;张慧琴等,2024)。3种供试昆虫均于2024年8月采自新疆吐鲁番市。在实验室内,将采集到的野外种群饲养于饲养盒(高6.5 cm、长15 cm、宽11 cm)中,盒内放置枯树枝,并隔天添加人工饲料(小麦胚芽)。在自然条件下饲养,试虫饥饿24 h,备用。标本凭证现存放于新疆农业大学生命科学学院标本室。
1.2 样品制备
分别选取3头何氏胖漠甲、谢氏宽漠甲、隆胸鳖甲雌性成虫,先用液氮迅速冷冻2 min致死,然后用超纯水清洗3遍,再用滤纸吸干水分。将样品放入20 mL玻璃瓶,同时加适量色谱纯正己烷(纯度为99%,购于国药集团化学试剂有限公司)浸没虫体,浸提10 min。将浸提液移至一洁净1 mL色谱进样瓶内,最后以高纯N2在通风橱内将浸提液分别浓缩至40 µL。将浸提液转移至内衬管(安捷伦,美国)中,分别加入4 mg/kg正十五烷作为内标。采用手动进样法进样,进样量为1 μL。按照谢氏宽漠甲、何氏胖漠甲、隆胸鳖甲的顺序进样,每个物种进行3次生物学重复。
1.3 仪器分析条件
气相-色谱质谱联用仪GC-MS(7890A-5975C,安捷伦,美国)。
热解析固体进样器(热分离探头,安捷伦,美国)。
色谱柱是石英毛细管柱HP-5MS(0.25 mm,30 mm,0.25 μL),升温程序:起始温度50℃,保留2 min,以23℃/min升至28℃,再以2℃/min升至310℃,保留5 min。共31 min。载气为高纯氦气,流速为1 mL/min,柱头压是7.652 psi。电子轰击离子源(EI)的电子能量为70 eV,离子源温度为230℃,四极杆温度则是150℃。进样口温度是290℃,采用不分流模式。GC与MS间接口温度为300℃,溶剂延迟3 min(蒲宇辰等,2020)。
1.4 数据分析
1.4.1 表皮碳氢化合物的定性分析
将获得的质谱图离子碎片和各组分的保留时间与C7-C40标准品的保留时间进行比对,在NIST(https://webbook.nist.gov/chemistry/)数据库中检索,确认CHCs的结构,从而确定3种拟步甲CHCs的种类。
1.4.2 表皮碳氢化合物的定量分析
将获得的色谱总离子流程图进行CHCs特征离子M/Z = 57.0提取,分别对每一种CHCs的出峰面积进行积分,获得相应各组分峰面积。采用峰面积归一化法计算各色谱峰的相对含量(李群臣等,2019)。同时,以内标的峰面积为标准按照以下公式计算出每个色谱峰对应物质的单位含量。
$$ \mathrm{C}_{\mathrm{i}}=\left(\mathrm{C}_{\text {内标 }} \times \mathrm{A}_{\text {样品 }} / \mathrm{A}_{\text {内标 }}\right) \times \text { 稀释倍数 } $$ 式中供试样品第i个待测组分的含量为Ci,内标浓度为C内标,样品峰面积为A样品,内标峰面积A内标。
将待测样品的CHCs各化合物峰面积进行标准化,本文采样log函数转换法(Strohm et al., 2008),将提取后各组分的峰面积根据以下公式进行转换:
$$ \mathrm{Z}_{\mathrm{ij}}=\lg \left[\left(\mathrm{Y}_{\mathrm{ij}} / \mathrm{g}\left(\mathrm{Y}_{\mathrm{j}}\right)+1\right]\right. $$ 式中Zij代表转换后第j个样品的第i个化合物的峰面积,Yij代表第j个样品的第i个化合物峰面积,g(Yj)代表第j个样品的各组分色谱峰峰面积的几何平均数。
1.4.3 三种优势拟步甲表皮碳氢化合物的组成比较
所有试验数据的统计分析利用SPSS v27.0.1.0和R v4.3.2软件进行。利用SPSS v27.0.1.0对3种拟步甲CHCs绝对含量间的差异进行显著性检验,采用单因素方差分析(one-way ANOVA)和LSD多重比较的方法,显著性水平P均为0.05。利用R v4.3.2对数据进行主成分分析,将多变量降维,选择特征值大于1的特征变量作为提取后的主成分(Principal Component Analysis,PCA),并计算因子得分,再将因子得分作为自变量进判别分析(Linear Discriminant Analysis,LDA)。以3个不同物种作为分组变量,CHCs含量为自变量进行聚类分析,并通过比较样品间的距离来判断其亲缘关系远近。
1.4.4 三种拟步甲DNA提取、扩增及测序
取上述拟步甲后足至于1.5 mL离心管中,然后采用天根DP 304试剂盒(购于新疆研途生物科技有限公司),根据试剂盒说明书对组织样本的总DNA进行提取。以线粒体细胞色素氧化酶亚基I基因(Cytochrome c oxidase subunit I,COI)和28S rRNA基因(28S)作为DNA条形码标记,引物、PCR扩增产物由上海生工生物工程公司合成和测序(表 1)。
表 1 本研究引物序列Table 1 Primer sequences in the study基因Genes 引物名称Name of primers 引物序列Primer sequences 参考文献References 28S D2-3551F CGTCTTGCTTGATAGTGCAGC De Barro et al., 2000 D2-4068R TTGGTCCGTGTTTCAAGACGG COI F2183 CAACATTTATTTTGATTTTTTGG Simon et al., 1994 R3014 TCCAATGCACTAATCTGCCATATTA PCR反应体系25 μL,其中包含模板DNA 2 μL,2×F5TaqPCRMix 12.5 μL,上下游引物各1 μL,ddH2O 8.5 μL。COI基因的PCR条件如下:预变性94℃,4 min;变性94℃,45 s;退火50℃,90 s;延伸72℃,1 min;循环数34;续延伸72℃,8 min。28S基因PCR条件如下:预变性95℃,4 min;变性94℃,30 s;退火55℃,30 s;延伸72℃,1 min;循环数35;续延伸72℃,10 min。两个基因PCR完成后均在4℃保存。PCR反应完成后,将扩增后的样本用1 × TAE溶液和琼脂糖进行凝胶电泳,检测是否扩增成功。
1.4.5 系统发育树的构建
测序结果利用DNASTAR(Burland,2000)的SeqMan进行人工校对和序列拼接。由MEGA v11.0.13打开并用Clustal W排序,并保存为fas格式文件。使用DAMBE v7.3.32软件进行碱基替代饱和度检验计算Iss值、Iss.c值和P值,若Iss < Iss.c且P < 0.05,则说明核苷酸序列替换未饱和,可以进行建树(Xia et al., 2003;Xia and Lemey, 2009)。本研究采用Phylosuite v1.2.3(Xiang et al., 2023)中的MrByes模块对上述9个样本构建BI树,在NCBI(National Center for Biotechnology Information)的GenBank(GenBank Overview(nih.gov))下载步甲科Carabidae的Oregus aereus作为外群(GenBank登录号COI:AF466846.1、28S:EU797375.1)。最后所得进化树运用iTOL(https://itol.embl.de/itol.cgi)网站进行查看和美化。
2. 结果与分析
2.1 气相色谱-质谱联用(GC-MS)分析总离子流图
对何氏胖漠甲、谢氏宽漠甲、隆胸鳖甲雌性成虫CHCs进行GC-MS分析,获得了3种拟步甲CHCs的总离子流程图。结果表明,3种拟步甲中共检测到44种CHCs,其中隆胸鳖甲、谢氏宽漠甲、何氏胖漠甲分别含19、25和32种,此外3种拟步甲CHCs出峰时间和碳数范围不同,何氏胖漠甲出现于11.62~28.08 min,碳数范围是15~40;谢氏宽漠甲出现于12.41~20.58 min,碳数范围是15~33;隆胸鳖甲出现于8.75~17.96 min,碳数范围是14~31(图 1)。
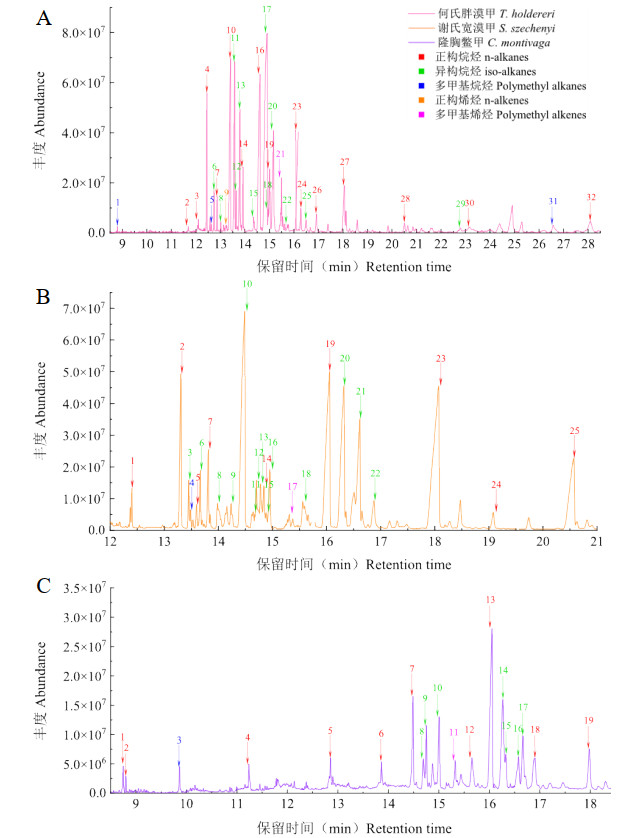 图 1 何氏胖漠甲(A)、谢氏宽漠甲(B)和隆胸鳖甲(C)的表皮碳氢化合物总离子流程图Fig. 1 Total ion chromatograms of CHCs from Trigonoscelis holdereri (A), Sternoplax szechenyi (B), and Colposcelis montivaga (C)
 下载:
全尺寸图片
2.2 三种拟步甲表皮碳氢化合物组分分析
3种拟步甲皆含有正构烷烃、异构烷烃、多甲基烷烃、正构烯烃等共四大类CHCs。其中,正构烷烃种类和含量在所有CHCs中的占比最高,为47.93%~53.57%。其次是异构烷烃,占所有CHCs中的34.74%~47.06%。种类最少的是多甲基烷烃(1.67%~5.41%)、正构烯烃(1.19%)、多甲基烯烃(2.57%~5.09%)。不同物种之间CHCs的相对含量存在差异,3种拟步甲在正构烷烃、正构烯烃无显著差异(F2,6 = 0.725,P = 0.523;F2,6 = 1.000,P = 0.422),但何氏胖漠甲的异构烷烃相对含量显著低于谢氏宽漠甲、隆胸鳖甲(F2,6 = 4.158,P < 0.05)。这一结果表明,3种拟步甲CHCs以正构烷烃等含碳数为14~36不等的直链饱和烃为主(表 2)。
表 2 三种拟步甲表皮碳氢化合物组成及相对含量Table 2 Composition and relative abundance of CHCs in three tenebrionid species物种
Species种类及相对含量(%)Components and relative content 正构烷烃
n-alkanes异构烷烃
iso-alkanes多甲基烷烃
Polymethyl alkanes正构烯烃
n-alkenes多甲基烯烃
Polymethyl alkenes何氏胖漠甲
T. holdereri14 53.57 ± 5.46 Aa 13 34.74 ± 3.20 Bb 3 5.41 ± 2.76 Ca 1 1.19 ± 1.19 Ca 1 5.09 ± 1.06 Ca 谢氏宽漠甲
S. szechenyi11 47.93 ± 2.37 Aa 12 46.99 ± 3.53 Aa 1 1.67 ± 1.67 Ba 0 - 1 3.42 ± 1.71 Ba 隆胸鳖甲
C. montivaga10 48.41 ± 2.26 Aa 7 47.06 ± 3.69 Aa 1 1.96 ± 1.96 Ba 0 - 1 2.57 ± 2.57 Ba 注:表中含量数据为平均数±标准误。含量中,同行不同大写字母表示在0. 05水平上显著差异;同列不同小写英文字母表示在0. 05水平上显著差异。Note: Data in the table were expressed as mean ± SE. Within rows, different uppercase letters indicated significant differences at P < 0.05; within columns, different lowercase letters denoted significant differences at P < 0.05. 2.2.1 正构烷烃组分及含量
3种拟步甲共检测到18种正构烷烃,均含有正二十四烷、正二十六烷、正二十七烷、正二十八烷、正二十九烷、正三十烷、正三十一烷等7种正构烷烃。在何氏胖漠甲中,正二十七烷含量最高,其次为正二十九烷,正三十烷含量最低。在谢氏宽漠甲中,正二十七烷含量最高,其次为正三十一烷,正二十四烷含量最低。在隆胸鳖甲中,正二十九烷含量最高,其次为正二十七烷,正二十六烷含量最低(表 3)。
表 3 三种拟步甲正构烷烃种类及含量Table 3 Types and content of n-alkanes in three tenebrionid species正构烷烃种类
Types of n-alkanes正构烷烃含量(mg/L)Content of n-alkanes 何氏胖漠甲T. holdereri 谢氏宽漠甲S. szechenyi 隆胸鳖甲C. montivaga 正十四烷n-C14 - - 0.03 ± 0.03 正十七烷n-C17 - - 1.00 ± 1.00 正二十烷n-C20 - - 3.34 ± 1.91 正二十一烷n-C21 0.23 ± 0.14 - - 正二十二烷n-C22 0.10 ± 0.10 - - 正二十三烷n-C23 4.50 ± 2.29 a 0.85 ± 0.45 a - 正二十四烷n-C24 1.11 ± 0.43 a 0.91 ± 0.91 a 1.45 ± 1.45 a 正二十五烷n-C25 15.09 ± 6.08 a 7.75 ± 3.10 a - 正二十六烷n-C26 3.49 ± 1.43 a 2.66 ± 1.42 a 1.00 ± 1.00 a 正二十七烷n-C27 23.86 ± 8.48 a 22.39 ± 9.91 a 18.53 ± 11.30 a 正二十八烷n-C28 2.53 ± 2.10 a 2.54 ± 2.54 a 5.36 ± 2.52 a 正二十九烷n-C29 15.84 ± 5.15 a 16.99 ± 7.90 a 68.04 ± 45.24 a 正三十烷n-C30 0.65 ± 0.65 a 2.98 ± 0.45 a 10.71 ± 5.44 a 正三十一烷n-C31 6.50 ± 2.17 a 21.31 ± 10.55 a 13.15 ± 7.68 a 正三十二烷n-C32 - 0.66 ± 0.66 - 正三十三烷n-C33 0.93 ± 0.47 b 11.36 ± 4.61 a - 正三十四烷n-C34 0.71 ± 0.43 - - 正三十六烷n-C36 3.01 ± 1.51 - - 注:表中含量数据为平均数±标准误。含量中,同行不同小写英文字母表示在0.05水平上显著差异(下同)。Note: Data were presented as mean ± SE. Within the same row, different lowercase letters indicated significant differences at the 0.05 level (P < 0.05; the same convention applies below). 何氏胖漠甲含有4种特有正构烷烃:正二十一烷、正二十二烷、正三十四烷、正三十六烷;谢氏宽漠甲仅检测出1种特有正构烷烃,为正三十二烷;隆胸鳖甲含有3种特有正构烷烃:正十四烷、正十七烷、正二十烷。且谢氏宽漠甲的正三十三烷含量显著高于何氏胖漠甲和隆胸鳖甲(P = 0.033,P = 0.024)(表 3)。
综上所述,隆胸鳖甲、谢氏宽漠甲、何氏胖漠甲分别检测出10、11、14种正构烷烃,正二十七烷、正二十九烷、正三十一烷是3种拟步甲正构烷烃中的主要种类,且奇数碳链的正构烷烃含量更高,除正三十三烷以外,各组分均不存在显著差异。
2.2.2 支链烷烃组分及含量
3种拟步甲CHCs中支链烷烃主要包括异构烷烃和多甲基烷烃两大类。共检测到20种异构烷烃,仅含有2种共有异构烷烃:3-甲基二十七烷、11-甲基二十九烷。从何氏胖漠甲表皮中检测出13种异构烷烃,其中11-甲基二十七烷含量最高,其次为3-甲基二十七烷,2-甲基二十八烷含量最低。从谢氏宽漠甲表皮中检测12种异构烷烃,其中3-甲基二十七烷含量最高,其次为11-甲基二十九烷,2-甲基二十八烷含量最低。在隆胸鳖甲中,11-甲基二十九烷含量最高,其次为3-甲基二十九烷和3-甲基二十七烷,15-甲基二十九烷含量最低(表 4)。
表 4 三种拟步甲支链烷烃种类及含量Table 4 Types and content of branched alkanes in three tenebrionid species支链烷烃种类
Types of branched alkanes支链烷烃含量(mg/L)Content of branched alkanes 何氏胖漠甲T. holdereri 谢氏宽漠甲S. szechenyi 隆胸鳖甲C. montivaga 9-甲基十八烷9-MeC18 - 0.82 ± 0.82 - 5-丁基二十二烷5-BuC22 0.61 ± 0.61 - - 7-己基二十二烷7-HexC22 0.63 ± 0.63 - - 11-癸基二十二烷11-DecC22 - 2.40 ± 1.57 - 2-甲基二十四烷2-MeC24 0.25 ± 0.25 - 11.68 ± 7.00 2-甲基二十五烷2-MeC25 - 1.04 ± 0.66 - 3-甲基二十五烷3-MeC25 4.49 ± 2.84 a 1.64 ± 0.96 a - 11-甲基二十五烷11-MeC25 7.04 ± 5.50 a 1.52 ± 0.78 a - 13-十一烷基二十五烷13-HenC25 0.42 ± 0.42 a 1.14 ± 1.14 a - 3-甲基二十六烷3-MeC26 1.10 ± 0.56 a 0.82 ± 0.82 a - 2-甲基二十七烷2-MeC27 - 6.67 ± 4.10 a 7.22 ± 4.34 a 3-甲基二十七烷3-MeC27 11.40 ± 4.34 a 16.69 ± 10.32 a 13.92 ± 7.84 a 11-甲基二十七烷11-MeC27 37.57 ± 14.74 - - 13-甲基二十七烷13-MeC27 - 8.3 ± 5.38 - 2-甲基二十八烷2-MeC28 0.16 ± 0.16 a 0.74 ± 0.74 a - 3-甲基二十九烷3-MeC29 0.29 ± 0.29 a - 13.56 ± 8.97 a 7-甲基二十九烷7-MeC29 - - 6.32 ± 3.42 11-甲基二十九烷11-MeC29 1.47 ± 0.73 a 11.96 ± 6.57 a 29.42 ± 16.42 a 15-甲基二十九烷15-MeC29 - - 4.70 ± 2.14 17-十六烷基三十四烷17-CetC34 0.24 ± 0.24 - - 2, 4-二甲基二十二烷2, 4-diMeC22 0.10 ± 0.10 - - 2, 6, 11-三甲基十二烷2, 6, 11-triMeC12 0.06 ± 0.06 a 0.29 ± 0.29 a - 13, 17, 21-三甲基三十七烷13, 17, 21-triMeC37 4.16 ± 3.15 - - 2, 6, 11, 15-四甲基十六烷2, 6, 11, 15-4MeC16 - - 0.86 ± 0.86 3种拟步甲共检测到4种多甲基烷烃,分别是2, 4-二甲基二十二烷、2, 6, 11-三甲基十二烷、13, 17, 21-三甲基三十七烷、2, 6, 11, 15-四甲基十六烷。其中13, 17, 21-三甲基三十七烷、2, 4-二甲基二十二烷为何氏胖漠甲特有多甲基烷烃;谢氏宽漠甲仅含有一种多甲基烷烃为2, 6, 11-三甲基十二烷;隆胸鳖甲特有多甲基烷烃为2, 6, 11, 15-四甲基十六烷(表 4)。
综上所述,在异构烷烃中,隆胸鳖甲、谢氏宽漠甲、何氏胖漠甲分别检测出7、12、13种异构烷烃,11-甲基二十七烷、11-甲基二十九烷、3-甲基二十七烷、3-甲基二十九烷为主要种类;3种拟步甲多甲基烷烃种类和含量均较少,且3种拟步甲各支链烷烃在含量上均不存在显著差异。
2.2.3 烯烃组分及含量
3种拟步甲CHCs中不饱和烃主要包括正构烯烃和多甲基烯烃两大类。共检测到2种不饱和烃,分别是顺式-9-二十三烯和反式角鲨烯,其中反式角鲨烯为隆胸鳖甲、谢氏宽漠甲、何氏胖漠甲共有化合物(表 5)。与正构烷烃和支链烷烃相比,不饱和烷烃的种类和含量均较少,由此可见不饱和烃不是3种拟步甲CHCs的主要组成成分。
表 5 三种拟步甲烯烃种类及含量Table 5 Types and content of alkenes in three tenebrionid species烯烃种类
Types of alkenes烯烃含量(mg/L)Content of alkenes 何氏胖漠甲T. holdereri 谢氏宽漠甲S. szechenyi 隆胸鳖甲C. montivaga 顺式-9-二十三烯9-C23ene 0.17 ± 0.17 - - 反式角鲨烯Squalene 2.60 ± 1.21 a 0.74 ± 0.40 a 1.80 ± 1.80 a 2.3 三种拟步甲表皮碳氢化合物相似性和差异性分析
以各组分的转换峰面积为变量对44种CHCs进行主成分分析,选取特征值大于1的7个特征变量为主成分,累计贡献率为98.16%,说明7个主成分基本保留了原始变量的信息。结果显示,3种拟步甲在主成分分析轴上没有明显的分离,说明在干旱条件下,同域分布的3种拟步甲CHCs组成具有明显的相似性(图 2)。
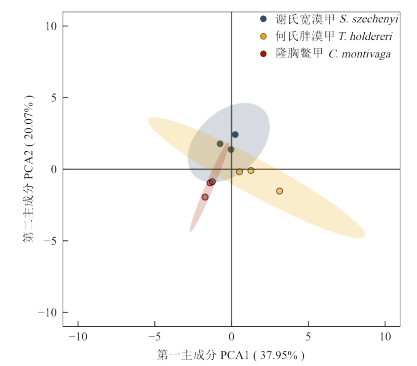 图 2 三种拟步甲主成分分析得分图Fig. 2 PCA score plot of the three tenebrionid species下载:
全尺寸图片
根据上述主成分分析结果,获取11种3种拟步甲差异相关的主要CHCs:正二十三烷、正二十五烷、正二十七烷、正三十一烷、正三十三烷、正三十六烷、2-甲基二十五烷、11-甲基二十五烷、11-甲基二十七烷、2-甲基二十八烷、反式角鲨稀,并进行判别分析,获得2个特征根,通过卡方检验表明2个特征根均具有统计学意义,其中LD1可解释变异99.60%,LD2可解释变量的0.40%,2个特征根共可解释原始变量方差的100%。统计结果表明,3种拟步甲的CHCs成分存在显著差异(Wilks'λ = 0,F3,8 = 41.109,P < 0.001),说明通过这2个特征根即可完全解释何氏胖漠甲、谢氏宽漠甲、隆胸鳖甲的CHCs色谱图差异(表 6,图 3)。
表 6 判别分析特征根卡方检验Table 6 Chi-square test of eigenvalues from discriminant analysis特征根
Characteristic root特征值
Eigenvalue(math.)累计解释变异率(%)
Cumulative explained variance典型相关系数
Typical correlation coefficientWilks'λ 卡方值
Chi-square value自由度
Degrees of freedom显著性
SignificanceLD1 1 398.862 99.6 1.000 0.000 41.109 8 < 0.001 LD2 5.628 100 0.921 0.151 8.511 3 0.037 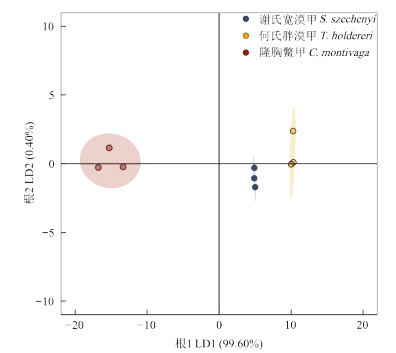 图 3 三种拟步甲表皮碳氢化合物在根1和根2上的分布图Fig. 3 Distribution of CHCs in three tenebrionid species across discriminant LD 1 and LD 2下载:
全尺寸图片
2.4 三种拟步甲表皮碳氢化合物聚类分析
基于拟步甲3个物种9个样本的2个基因片段(COI,28S)的DNA序列数据集在PhyloSuite软件下构建了BI系统发育树(图 4)。系统发育树结果显示:何氏胖漠甲首先分离出来,且为单系(BPP = 1.00),谢氏宽漠甲属于漠甲族却与隆胸鳖甲(鳖甲族)聚为一支,此关系中3个物种均为单系。
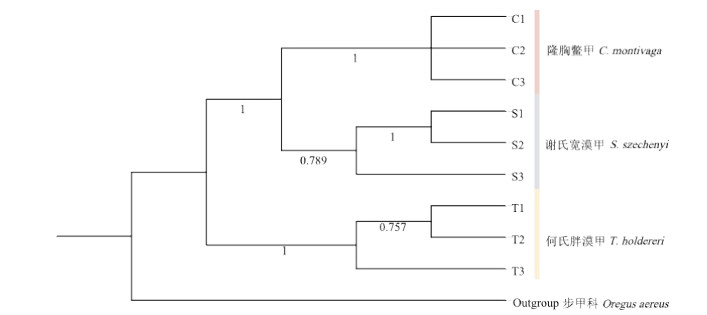 图 4 联合基因(COI和28S)推断三种拟步甲的贝叶斯系统发育树。节点附近的数值是贝叶斯后验概率(BPP)Fig. 4 Bayesian phylogenetic tree of three tenebrionid species inferred from concatenated joint genes (COI and 28S). with bayesian posterior probabilities (BPP) at nodes下载:
全尺寸图片
针对3种拟步甲CHCs聚类分析分析,结果表明:谢氏宽漠甲与隆胸鳖甲首先归为一类,二者在于何氏胖漠甲归为一类,3种拟步甲CHCs的种内相似度高于种间(图 5)。聚类结果与基于分子标记的系统发育结果相似,即可以利用CHCs对同域分布的3种拟步甲进行区分,并建立系统发育关系。
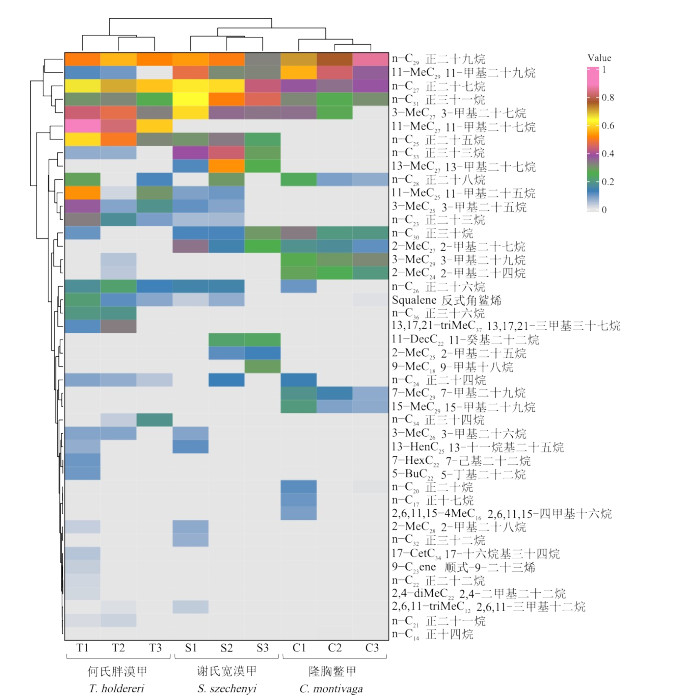 图 5 三种拟步甲表皮碳氢化合物热图Fig. 5 Heatmap of CHCs in three tenebrionid species下载:
全尺寸图片
3. 结论与讨论
本研究通过GC-MS分析揭示了吐鲁番盆地3种优势拟步甲(何氏胖漠甲、谢氏宽漠甲、隆胸鳖甲)CHCs的组成特征。结果表明:3种拟步甲共检测到44种CHCs,其中何氏胖漠甲32种、谢氏宽漠甲25种和隆胸鳖甲19种。正构烷烃为核心成分(47.93%~53.57%),以C14-C36直链饱和烃为主,其中C27、C29、C31等奇数碳链占优势,且何氏胖漠甲特有C34、C36等超长链烷烃(碳数达40),3种拟步甲仅检测到4种短链烷烃(碳链长度小于20)。异构烷烃次之(34.74%~47.06%),以3-甲基二十七烷、11-甲基二十九烷等单甲基支链烷烃为主。多甲基烷烃(1.67%~5.41%)和烯烃(2.57%~6.28%)占比最低,3种拟步甲仅含有一种共有不饱和烃——反式角鲨烯。在功能上,角鲨烯则具有耐缺氧和防止紫外线损伤的功效(Huang et al., 2009;邱春媚和殷光玲,2013),该成分可能与其荒漠环境适应密切相关。主成分分析表明,吐鲁番盆地3种优势拟步甲的CHCs组成具有明显的相似性。综合分析表明,3种拟步甲CHCs的组成呈现以下特征:首先,其正构烷烃组分表现出碳链延长趋势;其次,含有更多的单甲基支链烷烃;同时,多甲基支链烷的种类及相对含量均呈现明显缩减态势。
昆虫利用CHCs减少蒸腾作用带来的水分损失使其能够在干旱环境下生存和繁衍(Wang et al., 2022)。因此,生活在潮湿生境中的物种通常与生活在干旱栖息地的物种具有不同的CHCs组成(Van Wilgenburg et al., 2011;Menzel et al., 2017)。本研究揭示拟步甲科昆虫CHCs的组成特征与其生境干旱程度存在适应性关联。通过分析16种拟步甲数据(表 7)发现,干旱生境物种(如隐舌甲属Cryptoglossa等)CHCs以高比例正构烷烃(41%~78.5%)和末端支链烷烃(16%~30%)为主,而湿润生境物种(如圆褐甲属Cylindrinotus等)则以内部支化单甲基烷烃(21%~45%)和多甲基烷烃(二甲基、三甲基等)占优。
表 7 拟步甲科昆虫表皮碳氢化合物组成Table 7 Composition of CHCs in tenebrionid species属
Genus物种
Species表皮碳氢化合物含量(%)
Cuticular hydrocarbon content生境
Habitat参考文献
ReferencesA B C D E F G Phylan P.gibbus 19 - 2 21 46 10 - 海岸Coast Lockey,1981 圆褐甲属Cylindrinotus C. laevioctostriatus 13 - 27 18 33 7 - 森林Forest Lockey,1981 Onymacris O. rugatipennis 26 - 20 40 14 - - 河床Riverbed Lockey,1982a Physadesmia P. globosa 34 - 13 45 8 - - 河床Riverbed Lockey,1982b Stenocara S. gracilipes 35 - 13 36 16 - - 河床Riverbed Lockey,1982b Zophosis Z. gracilipes 31 - 11 38 19 - - 河床Riverbed Lockey,1984 琵甲属Blaps B. mucronata 41 - 30 11 14 - - 苏格兰Scotland Lockey,1980 Himatismus H. sp. 41.7 - 40.9 15.6 - - - 灌丛Shrubland Lockey and Metcalfe, 1988 隐舌甲属Cryptoglossa C. verrucosa 78.5 - 21.5 - - - - 沙漠Desert Hadley,1978 Centrioptera C. muricata 55.3 - 44.7 - - - - 沙漠Desert Hadley,1978 Centrioptera C. variolosa 53.1 - 46.9 - - - - 沙漠Desert Hadley,1978 Onymacris O. plana 50 - 19 18 13 - - 沙漠Desert Lockey,1982a Zophosis Z. sp. 51 - 16 24 9 - - 沙漠Desert Lockey,1984 胖漠甲属rigonoscelis 何氏胖漠甲T. holdereri 43.8 6.3 18.8 21.9 3.1 6.3 - 沙漠Desert 本研究
This study宽漠甲属Sternoplax 谢氏宽漠甲S. szechenyi 44 4 24 24 - 4 - 胸鳖甲属Colposcelis 隆胸鳖甲C. montivaga 52.6 5.3 21.1 15.8 - - 5.3 注:A,正构烷烃;B,烯烃;C,2-甲基和3-甲基烷烃;D,内部支化的单甲基烷烃;E,二甲基烷烃;F,三甲基烷烃;G,四甲基烷烃。Note: A, n-alkanes; B, alkenes; C, 2- and 3-methyl alkanes; D, internally branched monomethyl alkanes; E, dimethyl alkanes; F, trimethyl alkanes; G, tetramethyl alkanes. 这种差异源于CHCs物理特性:CHCs的熔点越高其保水能力越强(Gibbs,2002),与其他烷烃相比,正构烷烃分子排列更紧密,因此其熔点更高(Sprenger et al., 2018),单甲基烷烃的熔点与甲基位置有关,随着甲基位置从分子末端向内部转移和甲基数量的增多,其熔点逐渐降低(Gibbs and Pomonist, 1995)。CHCs的熔点与碳主链长度有关,碳主链增加一个碳原子其熔点会提高1~3℃(Gibbs and Pomonist, 1995),对于相同的链长,熔点依次递减的顺序为:正构烷烃、单甲基烷烃、二甲基烷烃、烯烃(Gibbs,1998)。此外,正构烷烃和单甲基烷烃因强范德华键易结晶(Brooks et al., 2015),形成固态屏障以增强保水能力(Maroncelli et al., 1982)。与此一致的是,本研究3种拟步甲的CHCs组成与柱腹亮甲Eleodes armata(Hadley,1977)、箭蚁属Cataglyphis niger(Soroker and Hefetz, 2000)、红胡须蚁Pogonomyrmex barbatus(Wagner et al., 2001)、沙漠蝗Schistocerca gregaria(Heifetz et al., 1998)等生活在沙漠环境中的昆虫CHCs模式趋同,进一步验证了昆虫利用长链烷烃和单甲基长链烷烃来减少水分蒸发可能是一种常见机制(Wang et al., 2022)。因此,本研究推测吐鲁番盆地3种拟步甲采用相似的适应策略来抵御干旱环境,即通过合成更长碳链的正构烷烃、增加单甲基烷烃的种类、末端支链烷烃含量、并减少多甲基烷烃的种类及含量来适应干旱环境。
不同物种之间关键CHCs的差异可用于进行物种鉴定(Guillem et al., 2012)。本研究通过主成分分析获取11种与3种拟步甲差异相关的主要CHCs,并进行判别分析,结果表明利用LD1即可将其准确区分。在此基础上,基于CHCs对吐鲁番3种优势拟步甲进行聚类分析,结果显示3种拟步甲的CHCs在种内的相似度均高于种间,且何氏胖漠甲与谢氏宽漠甲、隆胸鳖甲的差异程度更大。该结果与基于联合基因(COI、28S)的系统发育结果一致,即可以利用CHCs对同域分布的3种拟步甲进行区别。这与双翅目(Ye et al., 2007)、鞘翅目(Fletcher et al., 2008)、膜翅目(Baracchi et al., 2010)等昆虫类群利用CHCs进行分类的结果相似。
尽管本研究揭示了吐鲁番盆地3种优势拟步甲CHCs在干旱适应与分类中的应用潜力,但性别与龄期对其组成的影响仍需深入探讨。例如:萤火虫Ellychnia corrusca(Ming and Lewis, 2010)、猿叶甲Phaedon cochleariae(Geiselhardt et al., 2009)和跳甲属Altica cirsicola、A. fragariae和A. viridicyane(Xue et al., 2016)存在明显的性别二态性;拟谷盗Tribolium destructor(Hebanowska et al., 1990)、埋葬甲Nicrophorus vespilloides(Steiger et al., 2007)不同生长阶段CHCs种类和含量存在差异。未来需进一步解析3种拟步甲CHCs的动态变化规律,以完善其生态与分类学应用体系。
致谢: 本文由新疆农业大学生命科学学院时磊教授第三次新疆综合科学考察项目(2022xjkk1200)资助,特此致谢。 -
图 1 何氏胖漠甲(A)、谢氏宽漠甲(B)和隆胸鳖甲(C)的表皮碳氢化合物总离子流程图
Fig. 1 Total ion chromatograms of CHCs from Trigonoscelis holdereri (A), Sternoplax szechenyi (B), and Colposcelis montivaga (C)
下载:
全尺寸图片
图 2 三种拟步甲主成分分析得分图
Fig. 2 PCA score plot of the three tenebrionid species
下载:
全尺寸图片
图 3 三种拟步甲表皮碳氢化合物在根1和根2上的分布图
Fig. 3 Distribution of CHCs in three tenebrionid species across discriminant LD 1 and LD 2
下载:
全尺寸图片
图 4 联合基因(COI和28S)推断三种拟步甲的贝叶斯系统发育树。节点附近的数值是贝叶斯后验概率(BPP)
Fig. 4 Bayesian phylogenetic tree of three tenebrionid species inferred from concatenated joint genes (COI and 28S). with bayesian posterior probabilities (BPP) at nodes
下载:
全尺寸图片
图 5 三种拟步甲表皮碳氢化合物热图
Fig. 5 Heatmap of CHCs in three tenebrionid species
下载:
全尺寸图片
表 1 本研究引物序列
Table 1 Primer sequences in the study
基因Genes 引物名称Name of primers 引物序列Primer sequences 参考文献References 28S D2-3551F CGTCTTGCTTGATAGTGCAGC De Barro et al., 2000 D2-4068R TTGGTCCGTGTTTCAAGACGG COI F2183 CAACATTTATTTTGATTTTTTGG Simon et al., 1994 R3014 TCCAATGCACTAATCTGCCATATTA 表 2 三种拟步甲表皮碳氢化合物组成及相对含量
Table 2 Composition and relative abundance of CHCs in three tenebrionid species
物种
Species种类及相对含量(%)Components and relative content 正构烷烃
n-alkanes异构烷烃
iso-alkanes多甲基烷烃
Polymethyl alkanes正构烯烃
n-alkenes多甲基烯烃
Polymethyl alkenes何氏胖漠甲
T. holdereri14 53.57 ± 5.46 Aa 13 34.74 ± 3.20 Bb 3 5.41 ± 2.76 Ca 1 1.19 ± 1.19 Ca 1 5.09 ± 1.06 Ca 谢氏宽漠甲
S. szechenyi11 47.93 ± 2.37 Aa 12 46.99 ± 3.53 Aa 1 1.67 ± 1.67 Ba 0 - 1 3.42 ± 1.71 Ba 隆胸鳖甲
C. montivaga10 48.41 ± 2.26 Aa 7 47.06 ± 3.69 Aa 1 1.96 ± 1.96 Ba 0 - 1 2.57 ± 2.57 Ba 注:表中含量数据为平均数±标准误。含量中,同行不同大写字母表示在0. 05水平上显著差异;同列不同小写英文字母表示在0. 05水平上显著差异。Note: Data in the table were expressed as mean ± SE. Within rows, different uppercase letters indicated significant differences at P < 0.05; within columns, different lowercase letters denoted significant differences at P < 0.05. 表 3 三种拟步甲正构烷烃种类及含量
Table 3 Types and content of n-alkanes in three tenebrionid species
正构烷烃种类
Types of n-alkanes正构烷烃含量(mg/L)Content of n-alkanes 何氏胖漠甲T. holdereri 谢氏宽漠甲S. szechenyi 隆胸鳖甲C. montivaga 正十四烷n-C14 - - 0.03 ± 0.03 正十七烷n-C17 - - 1.00 ± 1.00 正二十烷n-C20 - - 3.34 ± 1.91 正二十一烷n-C21 0.23 ± 0.14 - - 正二十二烷n-C22 0.10 ± 0.10 - - 正二十三烷n-C23 4.50 ± 2.29 a 0.85 ± 0.45 a - 正二十四烷n-C24 1.11 ± 0.43 a 0.91 ± 0.91 a 1.45 ± 1.45 a 正二十五烷n-C25 15.09 ± 6.08 a 7.75 ± 3.10 a - 正二十六烷n-C26 3.49 ± 1.43 a 2.66 ± 1.42 a 1.00 ± 1.00 a 正二十七烷n-C27 23.86 ± 8.48 a 22.39 ± 9.91 a 18.53 ± 11.30 a 正二十八烷n-C28 2.53 ± 2.10 a 2.54 ± 2.54 a 5.36 ± 2.52 a 正二十九烷n-C29 15.84 ± 5.15 a 16.99 ± 7.90 a 68.04 ± 45.24 a 正三十烷n-C30 0.65 ± 0.65 a 2.98 ± 0.45 a 10.71 ± 5.44 a 正三十一烷n-C31 6.50 ± 2.17 a 21.31 ± 10.55 a 13.15 ± 7.68 a 正三十二烷n-C32 - 0.66 ± 0.66 - 正三十三烷n-C33 0.93 ± 0.47 b 11.36 ± 4.61 a - 正三十四烷n-C34 0.71 ± 0.43 - - 正三十六烷n-C36 3.01 ± 1.51 - - 注:表中含量数据为平均数±标准误。含量中,同行不同小写英文字母表示在0.05水平上显著差异(下同)。Note: Data were presented as mean ± SE. Within the same row, different lowercase letters indicated significant differences at the 0.05 level (P < 0.05; the same convention applies below). 表 4 三种拟步甲支链烷烃种类及含量
Table 4 Types and content of branched alkanes in three tenebrionid species
支链烷烃种类
Types of branched alkanes支链烷烃含量(mg/L)Content of branched alkanes 何氏胖漠甲T. holdereri 谢氏宽漠甲S. szechenyi 隆胸鳖甲C. montivaga 9-甲基十八烷9-MeC18 - 0.82 ± 0.82 - 5-丁基二十二烷5-BuC22 0.61 ± 0.61 - - 7-己基二十二烷7-HexC22 0.63 ± 0.63 - - 11-癸基二十二烷11-DecC22 - 2.40 ± 1.57 - 2-甲基二十四烷2-MeC24 0.25 ± 0.25 - 11.68 ± 7.00 2-甲基二十五烷2-MeC25 - 1.04 ± 0.66 - 3-甲基二十五烷3-MeC25 4.49 ± 2.84 a 1.64 ± 0.96 a - 11-甲基二十五烷11-MeC25 7.04 ± 5.50 a 1.52 ± 0.78 a - 13-十一烷基二十五烷13-HenC25 0.42 ± 0.42 a 1.14 ± 1.14 a - 3-甲基二十六烷3-MeC26 1.10 ± 0.56 a 0.82 ± 0.82 a - 2-甲基二十七烷2-MeC27 - 6.67 ± 4.10 a 7.22 ± 4.34 a 3-甲基二十七烷3-MeC27 11.40 ± 4.34 a 16.69 ± 10.32 a 13.92 ± 7.84 a 11-甲基二十七烷11-MeC27 37.57 ± 14.74 - - 13-甲基二十七烷13-MeC27 - 8.3 ± 5.38 - 2-甲基二十八烷2-MeC28 0.16 ± 0.16 a 0.74 ± 0.74 a - 3-甲基二十九烷3-MeC29 0.29 ± 0.29 a - 13.56 ± 8.97 a 7-甲基二十九烷7-MeC29 - - 6.32 ± 3.42 11-甲基二十九烷11-MeC29 1.47 ± 0.73 a 11.96 ± 6.57 a 29.42 ± 16.42 a 15-甲基二十九烷15-MeC29 - - 4.70 ± 2.14 17-十六烷基三十四烷17-CetC34 0.24 ± 0.24 - - 2, 4-二甲基二十二烷2, 4-diMeC22 0.10 ± 0.10 - - 2, 6, 11-三甲基十二烷2, 6, 11-triMeC12 0.06 ± 0.06 a 0.29 ± 0.29 a - 13, 17, 21-三甲基三十七烷13, 17, 21-triMeC37 4.16 ± 3.15 - - 2, 6, 11, 15-四甲基十六烷2, 6, 11, 15-4MeC16 - - 0.86 ± 0.86 表 5 三种拟步甲烯烃种类及含量
Table 5 Types and content of alkenes in three tenebrionid species
烯烃种类
Types of alkenes烯烃含量(mg/L)Content of alkenes 何氏胖漠甲T. holdereri 谢氏宽漠甲S. szechenyi 隆胸鳖甲C. montivaga 顺式-9-二十三烯9-C23ene 0.17 ± 0.17 - - 反式角鲨烯Squalene 2.60 ± 1.21 a 0.74 ± 0.40 a 1.80 ± 1.80 a 表 6 判别分析特征根卡方检验
Table 6 Chi-square test of eigenvalues from discriminant analysis
特征根
Characteristic root特征值
Eigenvalue(math.)累计解释变异率(%)
Cumulative explained variance典型相关系数
Typical correlation coefficientWilks'λ 卡方值
Chi-square value自由度
Degrees of freedom显著性
SignificanceLD1 1 398.862 99.6 1.000 0.000 41.109 8 < 0.001 LD2 5.628 100 0.921 0.151 8.511 3 0.037 表 7 拟步甲科昆虫表皮碳氢化合物组成
Table 7 Composition of CHCs in tenebrionid species
属
Genus物种
Species表皮碳氢化合物含量(%)
Cuticular hydrocarbon content生境
Habitat参考文献
ReferencesA B C D E F G Phylan P.gibbus 19 - 2 21 46 10 - 海岸Coast Lockey,1981 圆褐甲属Cylindrinotus C. laevioctostriatus 13 - 27 18 33 7 - 森林Forest Lockey,1981 Onymacris O. rugatipennis 26 - 20 40 14 - - 河床Riverbed Lockey,1982a Physadesmia P. globosa 34 - 13 45 8 - - 河床Riverbed Lockey,1982b Stenocara S. gracilipes 35 - 13 36 16 - - 河床Riverbed Lockey,1982b Zophosis Z. gracilipes 31 - 11 38 19 - - 河床Riverbed Lockey,1984 琵甲属Blaps B. mucronata 41 - 30 11 14 - - 苏格兰Scotland Lockey,1980 Himatismus H. sp. 41.7 - 40.9 15.6 - - - 灌丛Shrubland Lockey and Metcalfe, 1988 隐舌甲属Cryptoglossa C. verrucosa 78.5 - 21.5 - - - - 沙漠Desert Hadley,1978 Centrioptera C. muricata 55.3 - 44.7 - - - - 沙漠Desert Hadley,1978 Centrioptera C. variolosa 53.1 - 46.9 - - - - 沙漠Desert Hadley,1978 Onymacris O. plana 50 - 19 18 13 - - 沙漠Desert Lockey,1982a Zophosis Z. sp. 51 - 16 24 9 - - 沙漠Desert Lockey,1984 胖漠甲属rigonoscelis 何氏胖漠甲T. holdereri 43.8 6.3 18.8 21.9 3.1 6.3 - 沙漠Desert 本研究
This study宽漠甲属Sternoplax 谢氏宽漠甲S. szechenyi 44 4 24 24 - 4 - 胸鳖甲属Colposcelis 隆胸鳖甲C. montivaga 52.6 5.3 21.1 15.8 - - 5.3 注:A,正构烷烃;B,烯烃;C,2-甲基和3-甲基烷烃;D,内部支化的单甲基烷烃;E,二甲基烷烃;F,三甲基烷烃;G,四甲基烷烃。Note: A, n-alkanes; B, alkenes; C, 2- and 3-methyl alkanes; D, internally branched monomethyl alkanes; E, dimethyl alkanes; F, trimethyl alkanes; G, tetramethyl alkanes. -
Akino T, Terayama M, Wakamura S, et al. Intraspecific variation of cuticular hydrocarbon composition in Formica japonica Motschoulsky (Hymenoptera: Formicidae) [J]. Zoological Science, 2002, 19 (10): 1155-1165. doi: 10.2108/zsj.19.1155 Ala‐Honkola O, Kauranen H, Tyukmaeva V, et al. Diapause affects cuticular hydrocarbon composition and mating behavior of both sexes in Drosophila montana [J]. Insect Science, 2020, 27 (2): 304-316. doi: 10.1111/1744-7917.12639 巴义彬. 中国漠甲亚科分类与地理分布(鞘翅目: 拟步甲科)[D]. 保定: 河北大学博士学位论文, 2012 BA YB. Systematics of Pimeliinae and its Distribution in China (Coleoptera: Tenebrionidae) [D]. Baoding: Doctoral Thesis of Hebei University, 2012. Baracchi D, Dapporto L, Teseo S, et al. Medium molecular weight polar substances of the cuticle as tools in the study of the taxonomy, systematics and chemical ecology of tropical hover wasps (Hymenoptera: Stenogastrinae) [J]. Journal of Zoological Systematics and Evolutionary Research, 2010, 48 (2): 109-114. doi: 10.1111/j.1439-0469.2009.00543.x Bazinet AL, Marshall KE, MacMillan HA, et al. Rapid changes in desiccation resistance in Drosophila melanogaster are facilitated by changes in cuticular permeability [J]. Journal of Insect Physiology, 2010, 56 (12): 2006-2012. doi: 10.1016/j.jinsphys.2010.09.002 Bouchard P, Bousquet Y, Aalbu RL, et al. Review of genus-group names in the family Tenebrionidae (Insecta, Coleoptera) [J]. ZooKeys, 2021, 1050: 1. Brooks L, Brunelli M, Pattison P, et al. Crystal structures of eight mono-methyl alkanes (C26-C32) via single-crystal and powder diffraction and DFT-D optimization [J]. International Union of Crystallography Journal, 2015, 2 (5): 490-497. doi: 10.1107/S2052252515010271 Buellesbach J, Whyte BA, Cash E, et al. Desiccation resistance and micro-climate adaptation: cuticular hydrocarbon signatures of different Argentine ant supercolonies across California [J]. Journal of Chemical Ecology, 2018, 44: 1101-1114. doi: 10.1007/s10886-018-1029-y Burland TG. DNASTAR's Lasergene Sequence Analysis Software [M]. Bioinformatics Methods and Protocols. Totowa: Humana Press, 2000: 71-91. Calla-Quispe E, Martel C, Ibañez AJ. Gender identity and sexual experience affect mating behaviour and chemical profile in the lesser mealworm, Alphitobius diaperinus (Coleoptera: Tenebrionidae) [J]. bioRxiv, 2021, 2021-08. Coumou D, Rahmstorf S. A decade of weather extremes [J]. Nature Climate Change, 2012, 2 (7): 491-496. doi: 10.1038/nclimate1452 戴华国, 李小鹰, 张红兵, 白蚁分类方法述评[J]. 昆虫知识, 2004, 41 (1): 20-23 Dai HG, Li XY, Zhang HB. A review of the classification on termites [J]. Chinese Bulletin of Entomology, 2004, 41 (1): 20-23. Dallerac R, Labeur C, Jallon JM. A delta 9 desaturase gene with different substrate specificity is responsible for the cuticular diene hydrocarbon polymorphism in Drosophila melanogaster [J]. Proceedings of the National Academy of Sciences, 2000, 97 (17): 9449-9454. doi: 10.1073/pnas.150243997 Das S, Manna S, Chatterjee O, et al. Unveiling the chemical and behavioural ecology of Tribolium castaneum (Herbst, 1797) in wheat flour: alterations in flour metabolic content and the role of chemical cues in modulating beetles' behaviour and regulating population growth [J]. Journal of Stored Products Research, 2025, 110: 102483. doi: 10.1016/j.jspr.2024.102483 De Barro PJ, Driver F, Naumann ID, et al. Descriptions of three species of Eretmocerus Haldeman (Hymenoptera: Aphelinidae) parasitising Bemisia tabaci (Gennadius) (Hemiptera: Aleyrodidae) and Trialeurodes vaporariorum (Westwood) (Hemiptera: Aleyrodidae) in Australia based on morphological and molecular data [J]. Australian Journal of Entomology, 2000, 39 (4): 259-269. doi: 10.1046/j.1440-6055.2000.00194.x Edney EB. Water Balance in Land Arthropods [M]. Berlin: Springer Science & Business Media, 2012. Ferveur JF, Cortot J, Rihani K, et al. Desiccation resistance: effect of cuticular hydrocarbons and water content in Drosophila melanogaster adults [J]. PeerJ, 2018, 6: e4318. doi: 10.7717/peerj.4318 Fletcher MT, Allsopp PG, McGrath MJ, et al. Diverse cuticular hydrocarbons from Australian canebeetles (Coleoptera: Scarabaeidae)[J]. Australian Journal of Entomology, 2008, 47 (2): 153-159. doi: 10.1111/j.1440-6055.2008.00643.x Fürstenau B, Hilker M. Cuticular hydrocarbons of Tribolium confusum larvae mediate trail following and host recognition in the ectoparasitoid Holepyris sylvanidis [J]. Journal of Chemical Ecology, 2017, 43: 858-868. doi: 10.1007/s10886-017-0885-1 高明媛, 王心丽, 李重九. 表皮碳氢化合物分析用于棉铃虫与烟青虫幼虫分类鉴别[J]. 昆虫知识, 1999, 36 (5): 266-269 Gao MY, Wang XL, Li CJ. Identification of Helicoverpa armigera and H. assulta larvae (Lepidoptera: Noctuidae) by cuticular hydrocarbon analysis [J]. Chinese Bulletin of Entomology, 1999, 36 (5): 266-269. 高明媛. 昆虫表皮中碳氢化合物在昆虫分类中的应用[J]. 昆虫学报, 2001, 44 (1): 119-122 Gao MY. Application of cuticular hydrocarbon analysis to insect taxonomy [J]. Acta Entomologica Sinica, 2001, 44 (1): 119-122. Geiselhardt S, Otte T, Hilker M. The role of cuticular hydrocarbons in male mating behavior of the mustard leaf beetle, Phaedon cochleariae(F. ) [J]. Journal of Chemical Ecology, 2009, 35: 1162-1171. doi: 10.1007/s10886-009-9704-7 Gibbs AG, Chippindale AK, Rose MR. Physiological mechanisms of evolved desiccation resistance in Drosophila melanogaster [J]. Journal of Experimental Biology, 1997, 200 (12): 1821-1832. doi: 10.1242/jeb.200.12.1821 Gibbs AG, Pomonis JG. Physical properties of insect cuticular hydrocarbons: the effects of chain length, methyl-branching and unsaturation [J]. Comparative Biochemistry and Physiology Part B: Biochemistry and Molecular Biology, 1995, 112 (2): 243-249. doi: 10.1016/0305-0491(95)00081-X Gibbs AG. Lipid melting and cuticular permeability: new insights into an old problem [J]. Journal of Insect Physiology, 2002, 48 (4): 391-400. doi: 10.1016/S0022-1910(02)00059-8 Gibbs AG. Water-proofing properties of cuticular lipids [J]. American Zoologist, 1998, 38 (3): 471-482. doi: 10.1093/icb/38.3.471 Ginzel MD, Blomquist GJ. Insect Hydrocarbons: Biochemistry and Chemical Ecology [M]. Extracellular Composite Matrices in Arthropods. Switzerland: Springer International Publishing, 2016: 221-252. Guillem RM, Driifhout FP, Martin SJ. Using chemo-taxonomy of host ants to help conserve the large blue butterfly [J]. Biological Conservation, 2012, 148 (1): 39-43. doi: 10.1016/j.biocon.2012.01.066 Hadley NF, Schultz TD. Water loss in three species of tiger beetles (Cicindela): Correlations with epicuticular hydrocarbons [J]. Insect Physiol. 1987, 33 (10): 677-682. doi: 10.1016/0022-1910(87)90050-3 Hadley NF. Cuticular permeability of desert tenebrionid beetles: correlations with epicuticular hydrocarbon composition[J]. Insect Biochemistry, 1978, 8 (1): 17-22. doi: 10.1016/0020-1790(78)90005-7 Hadley NF. Epicuticular lipids of the desert tenebrionid beetle, Eleodes armata: seasonal and acclimatory effects on composition [J]. Insect Biochemistry, 1977, 7 (3): 277-283. doi: 10.1016/0020-1790(77)90025-7 Hassemer MJ, Sant'Ana J, Borges M, et al. Revisiting the male-produced aggregation pheromone of the lesser mealworm, Alphitobius diaperinus (Coleoptera, Tenebrionidae): Identification of a six-component pheromone from a Brazilian population [J]. Journal of Agricultural and Food Chemistry, 2016, 64 (36): 6809-6818. doi: 10.1021/acs.jafc.6b02235 Hebanowska E, Malinski E, Latowska A, et al. A comparison of cuticular hydrocarbons of larvae and beetles of the Tribolium destructor [J]. Comparative Biochemistry and Physiology Part B: Bdestructor Biochemistry & Molecular Biology, 1990, 96: 815-819. Heifetz Y, Miloslavski I, Aizenshtat Z, et al. Cuticular surface hydrocarbons of desert locust nymphs, Schistocerca gregaria, and their effect on phase behavior [J]. Journal of Chemical Ecology, 1998, 24: 1033-1047. doi: 10.1023/A:1022302519373 Huang ZR, Lin YK, Fang JY. Biological and pharmacological activities of squalene and related compounds: potential uses in cosmetic dermatology [J]. Molecules, 2009, 14 (1): 540-554. doi: 10.3390/molecules14010540 Kather R, Martin SJ. Cuticular hydrocarbon profiles as a taxonomic tool: advantages, limitations and technical aspects [J]. Physiological Entomology, 2012, 37 (1): 25-32. doi: 10.1111/j.1365-3032.2011.00826.x Kwan L, Rundle HD. Adaptation to desiccation fails to generate pre-and postmating isolation in replicate Drosophila melanogaster laboratory populations [J]. Evolution, 2010, 64 (3): 710-723. doi: 10.1111/j.1558-5646.2009.00864.x 李群臣, 石庆型, 陈婷, 等. 表皮碳氢化合物在3种火蚁属蚂蚁成虫鉴定中的应用[J]. 环境昆虫学报, 2022, 44 (6): 1414-1425 Li QC, Shi QX, Chen T, et al. Identification of adult Solenopsis invicta, S. richteri and S. invicta x S. richteri by using cuticular hydrocarbons [J]. Joumal of Environmental Entomology, 2022, 44 (6): 1414-1425. 李群臣, 石庆型, 雷妍圆, 等. 中国昆虫表皮碳氢化合物与昆虫化学分类学的研究进展[J]. 环境昆虫学报, 2019, 41 (1): 62-69 Li QC, Shi QX, Lei YY, et al. Advances on research and techniques forinsect cuticular hydrocarbons analysis and their practice in chemical taxonomy in China [J]. Joumal of Environmental Entomology, 2019, 41 (1): 62-69. Li Y, Wang Y, Zhang H, et al. Exploring the species richness pattern and areas of endemism of Tenebrionidae (Coleoptera) in Xinjiang, China [J]. Diversity, 2022, 14 (7): 558. doi: 10.3390/d14070558 林涛, 陈婷, 何余容, 等. 一种可用于桔小实蝇表皮碳氢化合物分析的固体进样技术[J]. 昆虫学报, 2016, 59 (3): 278-291 Lin T, Chen T, He YR. A solid injection technique suitable for cuticular hydrocarbon analysis of Bactrocera dorsalis (Diptera: Tephritidae) [J]. Acta Entomologica Sinica, 2016, 59 (3): 278-291. Lockey KH, Metcalfe NB. Cuticular hydrocarbons of adult Himatismus species and a comparison with 21 other species of adult tenebrionid beetle using multivariate analysis [J]. Comparative Biochemistry and Physiology Part B: Comparative Biochemistry, 1988, 91 (2): 371-382. Lockey KH. Cuticular hydrocarbons of adult Blaps mucronata Latereille (Coleoptera: Tenebrionidae) [J]. Comparative Biochemistry and Physiology Part B: Comparative Biochemistry, 1980, 67 (1): 33-40. doi: 10.1016/0305-0491(80)90265-5 Lockey KH. Cuticular hydrocarbons of adult Cylindrinotus laevioctostriatus (Goeze) and Phylan gibbus (Fabricius) (Coleoptera: Tenebrionidae) [J]. Insect Biochemistry, 1981, 11 (5): 549-561. doi: 10.1016/0020-1790(81)90023-8 Lockey KH. Hydrocarbons of adult Onymacris plana (Péringuey) and Onymacris rugatipennis (HAAG) (Coleoptera: Tenebrionidae) [J]. Insect Biochemistry, 1982a, 12 (1): 69-81. doi: 10.1016/0020-1790(82)90073-7 Lockey KH. Hydrocarbons of adult Physadesmia globosa (HAAG) and Stenocara gracilipes (HAAG) (Coleoptera: Tenebrionidae) [J]. Insect Biochemistry, 1982b, 12 (3): 331-342. doi: 10.1016/0020-1790(82)90091-9 Lockey KH. Hydrocarbons of adult Zophosis (Gyrosis) species and Zophosis (Onychosis) gracilipes (Deyrolle) (Coleoptera: Tenebrionidae) [J]. Insect Biochemistry, 1984, 14 (6): 645-656. doi: 10.1016/0020-1790(84)90042-8 Lucas C, Fresneau D, Kolmer K, et al. A multidisciplinary approach to discriminating different taxa in the species complex Pachycondyla villosa (Formicidae) [J]. Biological Journal of the Linnean Society, 2002, 75 (2): 249-259. doi: 10.1111/j.1095-8312.2002.tb01425.x Maroncelli M, Qi SP, Strauss HL, et al. Nonplanar conformers and the phase behavior of solid n-alkanes [J]. Journal of the American Chemical Society, 1982, 104 (23): 6237-6247. doi: 10.1021/ja00387a013 Martin SJ, Helanterä H, Drijfhout FP. Evolution of species-specific cuticular hydrocarbon patterns in Formica ants [J]. Biological Journal of the Linnean Society, 2008, 95 (1): 131-140. doi: 10.1111/j.1095-8312.2008.01038.x Menzel F, Blaimer BB, Schmitt T. How do cuticular hydrocarbons evolve? Physiological constraints and climatic and biotic selection pressures act on a complex functional trait [J]. Proceedings of the Royal Society B: Biological Sciences, 2017, 284 (1850): 20161727. doi: 10.1098/rspb.2016.1727 Menzel F, Zumbusch M, Feldmeyer B. How ants acclimate: impact of climatic conditions on the cuticular hydrocarbon profile [J]. Functional Ecology, 2018, 32 (3): 657-666. doi: 10.1111/1365-2435.13008 Ming QL, Lewis SM. Mate recognition and sex differences in cuticular hydrocarbons of the diurnal firefly Ellychnia corrusca (Coleoptera: Lampyridae) [J]. Annals of the Entomological Society of America, 2010, 103 (1): 128-133. doi: 10.1603/008.103.0116 Niogret J, Felix AE, Nicot A, et al. Chemosystematics using cuticular compounds: a powerful tool to separate species in Mediterranean dung beetles (Coleoptera: Geotrupidae) [J]. Journal of Insect Science, 2019, 19 (2): 18. doi: 10.1093/jisesa/iez026 蒲宇辰, 向海军, 黄斌, 等. 水椰八角铁甲不同日龄和性别成虫表皮碳氢化合物的种类及动态[J]. 环境昆虫学报, 2020, 42 (4): 838-846 Pu YC, Xiang HJ, Huang B, et al. Categories and dynamics of cuticular hydrocarbons in Octodonta nipae adults with different ages and sexes [J]. Joumal of Environmental Entomology, 2020, 42 (4): 838-846. 邱春媚, 殷光玲. 角鲨烯软胶囊提高缺氧耐受力的研究[J]. 中国粮油学报, 2013, 28 (2): 52-54 Qiu CM, Yan GL. Study on the effects of squalene softgel on enhancing anoxia endurance function [J]. Journal of the Chinese Cereals and Oils Association, 2013, 28 (2): 52-54. Rouault JD, Marican C, Wicker-Thomas C, et al. Relations between cuticular hydrocarbon (HC) polymorphism, resistance against desiccation and breeding temperature; a model for HC evolution in D. melanogaster and D. simulans [C]. Drosophila melanogaster, Drosophila simulans: So Similar, So Different, 2004, 195-212. Simon C, Frati F, Beckenbach A, et al. Evolution, weighting, and phylogenetic utility of mitochondrial gene sequences and a compilation of conserved polymerase chain reaction primers [J]. Annals of the Entomological Society of America, 1994, 87 (6): 651-701. doi: 10.1093/aesa/87.6.651 Soroker V, Hefetz A. Hydrocarbon site of synthesis and circulation in the desert ant Cataglyphis niger [J]. Journal of Insect Physiology, 2000, 46 (7): 1097-1102. doi: 10.1016/S0022-1910(99)00219-X Sprenger PP, Burkert LH, Abou B, et al. Coping with the climate: cuticular hydrocarbon acclimation of ants under constant and fluctuating conditions [J]. Journal of Experimental Biology, 2018, 221 (9): jeb171488. Steiger S, Peschke K, Francke W, et al. The smell of parents: breeding status influences cuticular hydrocarbon pattern in the burying beetle Nicrophorus vespilloides [J]. Proceedings of the Royal Society B: Biological Sciences, 2007, 274 (1622): 2211-2220. doi: 10.1098/rspb.2007.0656 Stinziano JR, Sové RJ, Rundle HD, et al. Rapid desiccation hardening changes the cuticular hydrocarbon profile of Drosophila melanogaster [J]. Comparative Biochemistry and Physiology Part A: Molecular & Integrative Physiology, 2015, 180: 38-42. Strohm E, Kroiss J, Herzner G, et al. A cuckoo in wolves' clothing? Chemical mimicry in a specialized cuckoo wasp of the European beewolf (Hymenoptera, Chrysididae and Crabronidae) [J]. Frontiers in Zoology, 2008, 5: 1-12. Van Wilgenburg E, Symonds MRE, Elgar MA. Evolution of cuticular hydrocarbon diversity in ants [J]. Journal of Evolutionary Biology, 2011, 24 (6): 1188-1198. doi: 10.1111/j.1420-9101.2011.02248.x Wagner D, Tissot M, Gordon D. Task-related environment alters the cuticular hydrocarbon composition of harvester ants [J]. Journal of Chemical Ecology, 2001, 27: 1805-1819. doi: 10.1023/A:1010408725464 王书平, 苏翠翠, 朱雅君, 等, 表皮碳氢化合物在云杉大墨天牛和云杉小墨天牛鉴定中的应用[J]. 植物保护, 2017, 43 (1): 117-120 Wang SP, Su CC, Zhu YJ, et al. Identification of Monochamus urussovi and Monochamus suter by using cuticular hydrocarbons [J]. Plant Protection, 2017, 43 (1): 117-120. 王永兴. 吐鲁番盆地气候变化及其对水资源的可能影响[J]. 中国沙漠, 2000, 20 (2): 207 Wang YX. Climate change in Turpan Basin and its possible impacts on the water resources [J]. Journal of Desert Research, 2000, 20 (2): 207. Wang Z, Receveur JP, Pu J, et al. Desiccation resistance differences in Drosophila species can be largely explained by variations in cuticular hydrocarbons [J]. eLife, 2022, 11: e80859. doi: 10.7554/eLife.80859 王子琪, 谭垦. 东西方蜜蜂的表皮碳氢化合物分析[J]. 中国蜂业, 2024, 75 (6): 58-61 Wang ZQ, Tan K. The cuticular hydrocarbons analysis of Apis cerana and Apis mellifera [J]. Apiculture of China, 2024, 75 (6): 58-61. Wigglesworth VB. Transpiration through the cuticle of insects [J]. Journal of Experimental Biology, 1945, 21 (3-4): 97-114. doi: 10.1242/jeb.21.3-4.97 Xia X, Lemey P. Assessing substitution saturation with DAMBE [C]. The Phylogenetic Handbook: A Practical Approach to DNA and Protein Phylogeny, 2009, 2: 615-630. Xia X, Xie Z, Salemi, et al. An index of substitution saturation and its application [J]. Molecular Phylogenetics and Evolution, 2003, 26 (1): 1-7. Xiang CY, Gao F, Jakovlić I, et al. Using PhyloSuite for molecular phylogeny and tree-based analyses [J]. iMeta, 2023, 2 (1): e87. doi: 10.1002/imt2.87 Xue HJ, Zhang B, Segraves KA, et al. Contact cuticular hydrocarbons act as a mating cue to discriminate intraspecific variation in Altica flea beetles [J]. Animal Behaviour, 2016, 111: 217-224. doi: 10.1016/j.anbehav.2015.10.025 Ye G, Li K, Zhu J, et al. Cuticular hydrocarbon composition in pupal exuviae for taxonomic differentiation of six necrophagous flies[J]. Journal of Medical Entomology, 2007, 44 (3): 450-456. doi: 10.1093/jmedent/44.3.450 张红兵, 李小鹰, 戴华国, 等, 白蚁表皮碳氢化合物组分鉴定及分类学意义[J]. 昆虫学报, 2005, 48 (4): 582-587 Zhang HB, Li XY, Dai HG, et al. Analysis of cuticular hydrocarbons of termites and its application in taxonomy [J]. Acta Entomologica Sinica, 2005, 48 (4): 582-587. 张慧琴, 杜东升, 范泽, 等. 吐鲁番市植被变化及其对气候变化的响应研究[J]. 内蒙古气象, 2024, 2: 39-43 Zhang HQ, Du DS, Fan Y, et al. Vegetation change and its response to climate change in Turpan [J]. Meteorology Journal of Inner Mongolia, 2024, 2: 39-43. 赵成银, 何余容, 钟锋, 等. 西花蓟马表皮碳氢化合物成份分析[J]. 应用昆虫学报, 2011, 48 (3): 536-541 Zhao CY, He YR, Zhong F, et al. Analysis of cuticular hydrocarbons of Frankliniella occidentalis [J]. Chinese Journal of Applied Entomology, 2011, 48 (3): 536-541.
